باكوس يفكك حوسبة شبكية العين عبر شبكات عصبية تلافيفية
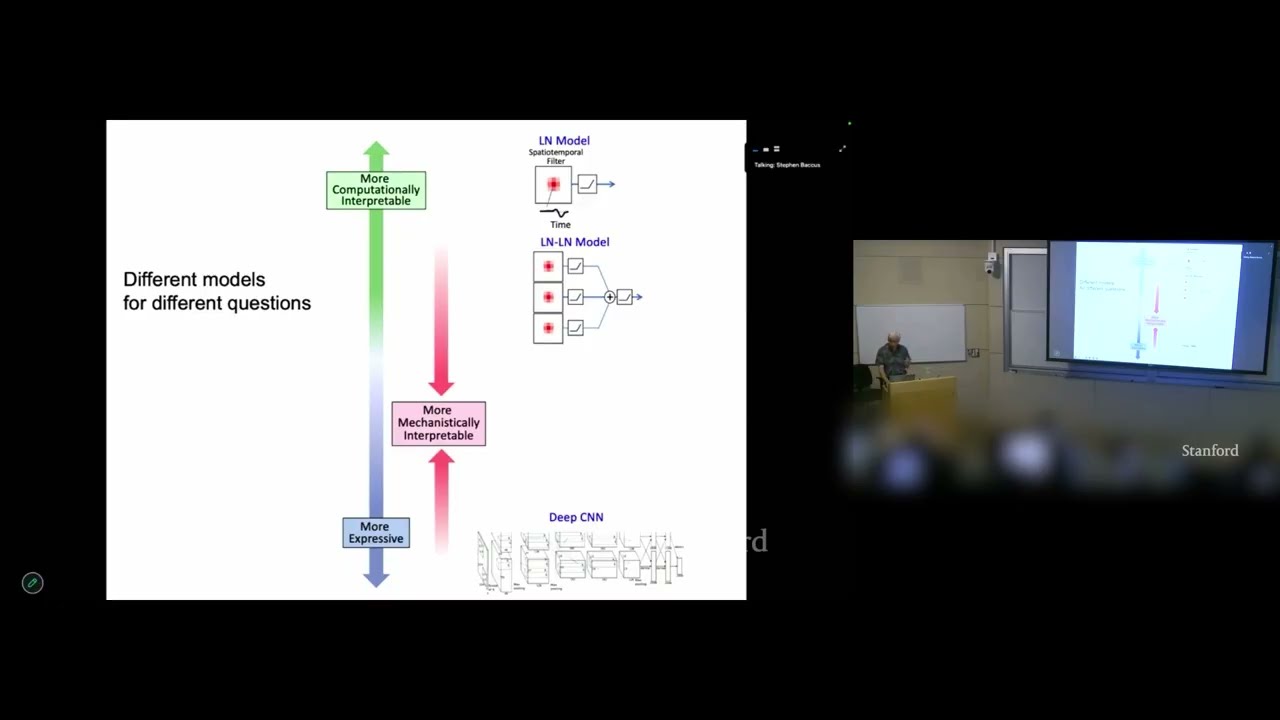
Stanford EE292R AI and Data for Science | Autumn 2026 | Models of Computation in the Retina — Stanford Online

Stanford Online

تثبت النماذج العصبية التلافيفية الدنيا أن مطابقة مدخلات ومخرجات المشاهد الطبيعية تكفي وحدها لكشف بنية الخلايا البينية وتوليد فرضيات ميكانيكية دقيقة للدارات البيولوجية.

AI-assisted summary of Stanford EE292R AI and Data for Science | Autumn 2026 | Models of Computation in the Retina — original source. Check the original for full context.

Source published:

Key ideas

  • تتطابق البنية التشريحية الفسيفسائية للشبكية تطابقاً وثيقاً مع الشبكات العصبية التلافيفية، حيث طوّرت الوحدات البينية في النماذج المدربة من الطرف إلى الطرف مجالات استقبالية ذات مركز ومحيط تضاهي العصبونات الحقيقية بمعامل ارتباط تجاوز 0.5. (20:03)
  • النماذج العصبية المدربة حصرياً على مقاطع المشاهد الطبيعية نجحت في التعميم ومحاكاة عقود من الظواهر البيولوجية المكتشفة بالمحفزات الاصطناعية، مثل التكيف مع التباين، واستباق الحركة، واستجابة المحفز المحذوف. (23:12)
  • أظهرت محاكاة السيليكون تبايناً وظيفياً دقيقاً في حساسية حركة الأجسام؛ حيث تُفضل خلايا الشبكية محفزات الارتعاش الدقيق لكشف وجود الأجسام، بينما تُفضل خلايا القشرة البصرية محفزات الحركة الانجرافية الأوسع لنقل تفاصيل الهوية. (30:36)
  • يكشف تطبيق التدرجات المتكاملة لتتبع المسارات الفردية أن نشاط الشبكات العصبية يتطلب إلغاءً متبادلاً لا يقل عن 18 ضعفاً بين الإشارات الاستثارية والتثبيطية للحفاظ على دقة الحساب دون انهيار. (42:43)

Detailed notes

## Background نُشرت هذه المحاضرة بواسطة قناة Stanford Online على منصة يوتيوب بتاريخ 17 أكتوبر 2026، ضمن مساق جامعة ستانفورد EE292R المعني بالذكاء الاصطناعي والبيانات من أجل العلم. يقدم المحاضرة البروفيسور ستيفن باكوس، أستاذ علم الأحياء العصبي في ستانفورد، وتتناول النماذج الحسابية القابلة للتفسير ميكانيكياً في النظام البصري المبكر ودور شبكية العين كدائرة نموذجية لفهم الشبكات العصبية.

## TL;DR يستعرض ستيفن باكوس كيفية توظيف الشبكات العصبية التلافيفية المصممة بحد أدنى من التعقيد لنمذجة حوسبة شبكية العين واستجاباتها للمشاهد الطبيعية المعقدة. ويوضح كيف تطوّر الوحدات البينية داخل النموذج تلقائياً مجالات استقبالية وبنى مناظرة للخلايا العصبية الحقيقية (مثل الخلايا ثنائية القطب وخلايا أماكرين) بمجرد تدريبها من الطرف إلى الطرف على مخرجات الخلايا العقدية. كما يشرح آليات التكيف الإحصائي، وحساسية حركة الأجسام، واستجابة المحفز المحذوف، مستخدماً تقنيات التفسير الآلي مثل التدرجات المتكاملة لتفكيك دور المسارات الفردية والإلغاء المتبادل بين التنبيه والتثبيط.

## Atmosphere & style تسود المحاضرة أجواء أكاديمية رصينة يمتزج فيها الشغف البحثي بالوضوح التعليمي الصارم، حيث يبسّط المحاضر المفاهيم الرياضية والبيولوجية المعقدة بأسلوب تدريجي يرحب بالأسئلة والنقاش. ينقل باكوس شعور الاكتشاف العلمي المبهر عندما تكشف النماذج الحسابية ذاتياً عن آليات حيوية داخلية دون توجيه مسبق، مما يمنح الجلسة طابعاً تفاعلياً يستحث التفكير المقارن بين ذكاء الآلة وحكمة البيولوجيا.

## Bulletin - [20:03](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1203s) تتطابق البنية التشريحية الفسيفسائية للشبكية تطابقاً وثيقاً مع الشبكات العصبية التلافيفية، حيث طوّرت الوحدات البينية في النماذج المدربة من الطرف إلى الطرف مجالات استقبالية ذات مركز ومحيط تضاهي العصبونات الحقيقية بمعامل ارتباط تجاوز 0.5. - [23:12](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1392s) النماذج العصبية المدربة حصرياً على مقاطع المشاهد الطبيعية نجحت في التعميم ومحاكاة عقود من الظواهر البيولوجية المكتشفة بالمحفزات الاصطناعية، مثل التكيف مع التباين، واستباق الحركة، واستجابة المحفز المحذوف. - [30:36](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1836s) أظهرت محاكاة السيليكون تبايناً وظيفياً دقيقاً في حساسية حركة الأجسام؛ حيث تُفضل خلايا الشبكية محفزات الارتعاش الدقيق لكشف وجود الأجسام، بينما تُفضل خلايا القشرة البصرية محفزات الحركة الانجرافية الأوسع لنقل تفاصيل الهوية. - [42:43](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=2563s) يكشف تطبيق التدرجات المتكاملة لتتبع المسارات الفردية أن نشاط الشبكات العصبية يتطلب إلغاءً متبادلاً لا يقل عن 18 ضعفاً بين الإشارات الاستثارية والتثبيطية للحفاظ على دقة الحساب دون انهيار.

## Key takeaways - [00:08](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=8s) فهم النظام العصبي يقتضي ربط الوظائف الحسابية مباشرة بالآليات الخلوية والمشابك وصياغة مبادئ نظرية مفسرة. - [02:19](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=139s) تمثل شبكية العين دائرة نموذجية مثالية لاختبار الحسابات العصبية نظراً لبنيتها البسيطة المكونة من ثلاث طبقات خلوية وقدرتها على العمل معزولة في طبق المختبر. - [04:05](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=245s) التنظيم الفسيفسائي لخلايا الشبكية يضمن توزيعاً مكانياً منتظماً يتطابق بنيوياً مع مفهوم الطبقات والقنوات في الشبكات العصبية التلافيفية. - [05:20](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=320s) الانتقال المنهجي من المحفزات الاصطناعية المبسطة إلى المشاهد الطبيعية مدعوماً بتسجيلات الأقطاب المتعددة أتاح بناء نماذج حاسوبية قادرة على توليد فرضيات ميكانيكية دقيقة. - [07:59](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=479s) قنوات الكالسيوم المعتمدة على الفولتية عند النهايات المشبكية للخلايا ثنائية القطب تفرض عتبات قوية تكسر الخطية وتتحكم في تدفق الإشارات إلى الخلايا العقدية. - [14:03](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=843s) نماذج الشبكات التلافيفية الدنيا تحقق أفضل توازن بين القدرة التعبيرية والانحياز الاستقرائي المستمد من البيولوجيا مقارنة بالنماذج الضخمة الجائعة للبيانات. - [20:03](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1203s) الوحدات المخفية داخل النماذج التلافيفية طوّرت تلقائياً خصائص تطابق العصبونات البينية البيولوجية الحقيقية واقتربت دقة تنبؤاتها من سقف الضجيج الفسيولوجي. - [26:47](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1607s) القدرة على محاكاة خلايا حساسية حركة الأجسام تستلزم تزويد النموذج ببيانات تدريب تتضمن حركة تفاضلية واقعية، ولا تكفي الصور المرتجفة وحدها. - [28:23](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1703s) تتبع حركة عين الفأر بدقة زاوية تقل عن درجة واحدة باستخدام الأشعة تحت الحمراء يعد شرطاً أساسياً لإعادة بناء الصورة الشبكية الحقيقية في تجارب الواقع الافتراضي. - [35:28](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=2128s) تتيح تقنية التدرجات المتكاملة تفكيك استجابة الخلية العقدية بدقة وتحديد مساهمات العصبونات البينية الاستثارية والتثبيطية مع ضمان خاصية الاكتمال الحسابي. - [37:51](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=2271s) تفسير ظاهرة استجابة المحفز المحذوف يعتمد على تباين نسب المساهمة بين ثلاثة مسارات خلوية ثنائية القطب تتغير ديناميكياً مع تردد الومضات. - [39:51](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=2391s) تظهر مساهمات الخلايا العصبية الفعلية في اتخاذ القرار تشتتاً كبيراً مقارنة بتفعيلاتها الواسعة، نتيجة لوجود عتبات التنشيط والإلغاء المشبكي المتبادل. - [42:43](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=2563s) الحقول الاستقبالية للخلايا تتغير ديناميكياً ولحظياً بحسب هيمنة مسارات عصبية محددة تحت تأثير المحفزات المختلفة. - [53:08](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=3188s) دمج القيود التشريحية لخريطة الاتصالات العصبية (Connectome) عبر دوال خسارة متعددة الأبعاد يمنع النماذج من الوقوع في فرط التخصيص عند تعدد أنواع الخلايا. - [56:32](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=3392s) تتميز معمارية شبكيات الفقاريات بتشابه تطوري كبير سمح بنقل النماذج المدربة على البرمائيات مباشرة إلى الفئران والرئيسيات بعد إعادة ضبط المعاملات.

## Detailed walkthrough ### [00:08](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=8s) Introduction to the Lecture and the Early Visual System

Stephen Baccus begins by thanking Brian and Nares for the invitation to deliver the opening lecture in this lecture series. He expresses that it is particularly fitting to kick off the series by examining the early visual system, noting that regardless of the level of complexity—whether dealing with biological or artificial neural networks—we still do not fully understand how they actually work. Baccus highlights that studies of the early visual system, and especially the retina, have historically stood at the forefront of uncovering how cells and synapses collaborate to perform useful computations. He frames the upcoming discussion around what has been learned from these studies and presents a methodology that he considers immensely valuable not just for neuroscience, but for understanding neural networks in general.

Acknowledging the diverse scientific backgrounds of the audience, Baccus encourages interruptions for basic questions if anything remains unclear. He then addresses the fundamental question of what it means to understand a system, breaking down the primary goals: describing system functions—such as detecting a predator or adapting to a visual scene—linking those functions directly to underlying mechanisms like cells and synapses, and formulating theoretical principles to explain why both the function and mechanisms operate the way they do. Baccus asserts that computational models are indispensable in this endeavor, particularly in complex architectures like the visual system, because high-dimensional inputs and mechanisms necessitate modeling to achieve what can truly be considered an explanation.

- **Main objectives in system understanding:** Describing function, linking function to cellular mechanisms, and formulating theoretical explanatory principles. - **Role of computation:** Computational models are essential for managing the high-dimensional inputs and mechanisms of complex neural systems.

[02:19](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=139s) The Retina as a Model Circuit for Neural Computation

Moving deeper into the biology, Baccus identifies the retina—located at the back of the eye—as an ideal testing ground for addressing these problems and achieving a solid understanding of relatively simple computations. He explains that we generally understand the primary job of the retina: translating visual signals into information carried by the optic nerve. To illustrate this, he points to a diagram showing a retinal ganglion cell firing trains of spikes repeatedly in response to a repeated stimulus. While the responses are reproducible, there is inherent noise or jitter that limits information transfer.

Baccus emphasizes that the retina is a relatively simple circuit made up of just three layers of cell bodies, meaning researchers can extract it from an animal, place it in a dish, and observe it behaving almost identically to how it would inside the living animal. The core objective is to decipher the neural code and trace the transformation from visual information hitting the photoreceptor layer down to spike trains in the optic nerve. Addressing why different cells exhibit distinct firing patterns, he explains that while different ganglion cells monitor different regions of the visual field, they also possess distinct intrinsic characteristics and visual features that drive unique spiking patterns. Although the retina does not handle high-level tasks like face recognition, it performs distinct functional categories: detection, adaptation to statistics, compression, trajectory estimation, prediction, and—to some extent—stimulus classification.

- **Retinal structure:** Consists of three layers of cell bodies and can function nearly identically when isolated in a dish. - **Key functional categories:** Detection, statistical adaptation, compression, trajectory estimation, prediction, and stimulus classification.

[04:05](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=245s) Cellular Architecture and the Mosaic Organization of the Retina

Baccus outlines the essential biological details of retinal architecture, noting that light absorption occurs in the photoreceptors. Signals travel straight through to bipolar cells via an excitatory pathway, and subsequently to ganglion cells, which also form an excitatory path. Simultaneously, a series of inhibitory neurons—horizontal cells and amacrine cells—handle lateral connections. Despite the presence of roughly five primary cell types that make the system manageable, there is considerable internal complexity, including around twelve different types of bipolar cells, thirty or more types of amacrine cells, and roughly thirty types of retinal ganglion cells.

Describing the spatial layout, Baccus explains a foundational simplifying principle: as a first approximation, these cell types tile the visual field like a mosaic. While multiple types may coexist at any given location, a single specific type of ganglion cell appears only once at that exact location. This repeating organization greatly simplifies understanding circuit operations and translates naturally into the computational models he plans to discuss.

```mermaid flowchart TD accTitle: Retinal Cell Architecture and Signal Flow accDescr: Flowchart illustrating the basic pathway of light signals from photoreceptors through bipolar cells and lateral interneurons to ganglion cells.

subgraph Layers["Retinal Layers & Cells"] PR["Photoreceptors\n(Light Absorption)"] HC["Horizontal Cells\n(Lateral Inhibition)"] BC["Bipolar Cells\n(~12 subtypes)"] AC["Amacrine Cells\n(Lateral Inhibition)"] GC["Ganglion Cells\n(~30 subtypes)"] end

PR -->|"Excitatory pathway"| BC BC -->|"Excitatory pathway"| GC PR --- HC BC --- AC ```

- **Mosaic tiling:** As a first approximation, each cell type covers the visual field like a mosaic, ensuring only one instance of a specific cell type exists at any single local position. - **Cellular diversity:** The retina contains about 5 primary cell types, branching into ~12 bipolar subtypes, 30+ amacrine subtypes, and ~30 retinal ganglion cell types.

[05:20](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=320s) Methodological Shifts: From Classical Stimuli to Natural Scenes

Discussing experimental approaches, Baccus contrasts the classical methodology with a newer paradigm adopted over the past decade. The classical approach takes a high-level function—such as detecting the direction of a moving object—and selects a specific artificial stimulus (like a moving bar or flashing spot) to test it. Because biological tissue has a limited lifespan, researchers must carefully design and execute these experiments within a tightly constrained window of one to two hours. Once a phenomenon is identified, the next step is building an abstract, non-biological computer model to capture neural responses, followed by reverse-engineering how cells and synapses perform operations like linear filtering or thresholding to generate a circuit hypothesis. Critics often debate how well these artificial-stimulus findings translate to natural scenes.

By contrast, the newer approach bypasses intermediate abstractions by directly presenting natural stimuli to the isolated retina or to the mouse visual cortex, recording activity using advanced multi-electrode technology. The first step here is constructing an accurate computational model that captures those responses. Regarding model selection, Baccus stresses that the fundamental question is always: “Why are you making this model?” because different goals require different modeling approaches. After reducing retinal and cortical responses into a computational model, researchers probe the model with un-tested stimuli, analyze cell-to-cell connectivity among model cell types, generate testable experimental hypotheses, and develop further explanations via heavy computer simulation—sparing researchers from arduous, purely empirical trial-and-error.

- **Classical approach:** Relies on artificial stimuli (flashing spots, moving bars), short experimental windows, and bottom-up hypothesis testing. - **Modern approach:** Directly uses natural stimuli coupled with multi-electrode recording and deep computational modeling to simulate and generate hypotheses rapidly.

[07:59](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=479s) The Challenge of Natural Scenes and Non-Linear Synaptic Thresholds

Baccus explores why natural scenes present such a steep computational challenge. If one stops at a second-order neuron like a bipolar cell and maps its spatiotemporal visual sensitivity using white noise, the bipolar cell reveals a defined receptive field structure with specific spatial and temporal weights—typically featuring an excitatory center and an inhibitory surround, each with distinct temporal dynamics. Such behavior can be closely approximated by a simple linear filter. If the entire visual system operated this way, analysis would be straightforward because a linear filter could predict any and all visual stimuli fed into the system.

However, reality is far more complex. Baccus points out that the first major hurdle lies at the synaptic terminal of the bipolar cell, driven by a strong threshold arising from voltage-gated calcium channels. Explaining the mechanism simply, when a bipolar cell depolarizes, calcium enters only if the depolarization crosses a specific threshold, meaning only signals of a certain strength are transmitted downstream to the ganglion cell.

- **Linear approximation limits:** While bipolar cell receptive fields can be approximated as linear spatiotemporal filters using white noise, real systems break this linearity. - **Voltage-gated calcium channels:** Create a strong synaptic threshold at the bipolar terminal, ensuring only sufficiently strong signals are passed to ganglion cells.

[11:41](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=701s) من نماذج LN إلى الشبكات العصبية التلافيفية في شبكية العين

يوضح البروفيسور ستيفن باكوس أن البنية الحسابية الأساسية في علم الأعصاب البصري تبدأ من مفهوم بسيط يتمثل في الترشيح المكاني أو المكاني-الزماني متبوعاً بعتبة لاخطية، وهو ما يُعرف على نطاق واسع في علم الأعصاب الحسي بنموذج "خطي-غير خطي" (Linear-Nonlinear أو LN model)، ويُشار إليه أيضاً بالمجال الاستقبالي للمرشح المكاني-الزماني أو الميزة البصرية المفضلة. وانطلاقاً من هذا المفهوم، يستعرض باكوس بحثاً تأسيسياً بدأه عام 2016 طالبان في مرحلة الدراسات العليا، وهما نيرو ما هيسواراناثان ولين ماكنتوش، تحت إشراف مشترك بين مختبر باكوس ومختبر سوري جانجولي؛ حيث عملت لين في مختبر باكوس بينما عمل نيرو في مختبر جانجولي، وقام كلاهما بإجراء التجارب الفيزيولوجية وبناء نماذج المحاكاة معاً، وهي تجربة يراها باكوس محورية جداً لمنحهما فهماً وبصيرة عميقة.

قام الباحثان في ذلك الوقت بتطبيق فئة من النماذج الحسابية التي كانت تكتسب زخماً وانتشاراً هائلين، وهي الشبكات العصبية التلافيفية (CNNs). ويشرح باكوس كيف تتطابق اللبنات الأساسية للنظام البصري المبكر تطابقاً تاماً مع مكونات الشبكات التلافيفية؛ فالمرشح المكاني أو المكاني-الزماني عندما يتكرر عبر شبكة العين ضمن توزيع فسيفسائي (Mosaic structure)، فإنه يمثل رياضياً وبنيوياً طبقة تلافيفية في شبكة عصبية. علاوة على ذلك، فإن وجود قنوات متعددة (Multiple channels) في الطبقة التلافيفية، لكل منها خصائص ترشيح فريدة، يناظر تماماً التنوع الكبير في أنواع خلايا الشبكية، بينما تمثل إضافة طبقات تلافيفية متتالية التسلسل الهرمي الدقيق الذي يربط بين المستقبلات الضوئية، والخلايا ثنائية القطب، وخلايا أماكرين، وصولاً إلى الخلايا العقدية. ويؤكد باكوس أن هذا التطابق الوثيق ليس من قبيل الصدفة: “في الواقع، كانت الشبكات العصبية التلافيفية مستوحاة في الأصل من النظام البصري.”

```mermaid flowchart TD accTitle: Retinal Biology to Convolutional Neural Network Mapping accDescr: A comparison between the biological structure of the retina and the architecture of a convolutional neural network.

subgraph Bio ["النظام البصري البيولوجي"] direction TB B1["فسيفساء الخلايا الشبكية"] B2["أنواع خلايا متعددة ومتمايزة"] B3["التسلسل الهرمي (ثنائية القطب إلى أماكرين)"] end

subgraph CNN ["الشبكة العصبية التلافيفية"] direction TB C1["الطبقة التلافيفية المكانية-الزمانية"] C2["قنوات ترشيح متعددة (Channels)"] C3["الطبقات المتتالية العميقة"] end

B1 <-->|"تناظر تركيبي"| C1 B2 <-->|"تناظر وظيفي"| C2 B3 <-->|"تسلسل هرمي"| C3 ```

- تم إطلاق هذا العمل البحثي المشترك في عام 2016 بقيادة الطالبين نيرو ولين وبإشراف مشترك من ستيفن باكوس وسوري جانجولي. - جمع المشروع بين التجارب المعملية الرطبة (wet-lab physiology) والنمذجة الحسابية المتقدمة لتعميق الرؤية التحليلية.

---

[14:03](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=843s) طيف النماذج والانحياز الاستقرائي: الموازنة بين التعبيرية والتفسير الآلي

ينتقل باكوس إلى مسألة اختيار النموذج المناسب، مؤكداً أن نوع النموذج يجب أن يرتبط مباشرة بالهدف العلمي المرجو منه. ويطرح تصنيفاً للنماذج يمتد على طول طيف حسابي: في الطرف الأبسط نجد نماذج LN الكلاسيكية (مرشح متبوع بعتبة)، بينما يقبع في الطرف المعاكس النماذج الضخمة فائقة التعبيرية مثل الشبكات التلافيفية العميقة جداً وصولاً إلى المحولات (Transformers). تتميز هذه النماذج الضخمة بقدرتها على تمثيل أي دالة أو علاقة بين المدخلات والمخرجات، غير أنها "جائعة جداً للبيانات"، وتتطلب كميات هائلة من التسجيلات التجريبية لضبط معاملاتها. وبين هذين القطبين توجد فئة وسيطة، تبدأ بنماذج LN-LN (شبكة من طبقتين) وصولاً إلى ما يسميه باكوس "نماذج الشبكات العصبية التلافيفية الدنيا" (Minimal CNN models)، وهي أصغر بنية شبكية كافية لالتقاط بيانات الاستجابة بدقة، وتجمع بين القدرة التعبيرية وقابلية التفسير الآلي الميكانيكي.

ويشير باكوس إلى أن اختيار الموقع المناسب في هذا التسلسل الهرمي يمثل نقطة خلافية ونقاشاً علمياً واسعاً: “إذا كان هناك أي موضوع أو قضية يمكننا بدء نقاش أكبر حولها، فسأقول إنه سيكون من هذه الشريحة.” ويوضح أن النماذج الوسيطة تستفيد من "الانحياز الاستقرائي" (Inductive Bias) المستمد من المعرفة العميقة ببيولوجيا الجهاز العصبي، كالبنية الطبقية وديناميكيات المشابك العصبية. يتيح هذا الانحياز تدريب النماذج باستخدام كميات أقل بكثير من البيانات، فضلاً عن تقديم تفسيرات وظيفية مفهومة. غير أن التحدي الجوهري يكمن في موازنة القيود: فالإفراط في فرض القيود يمنع النموذج من الوصول إلى الحل الرياضي الصحيح، بينما يؤدي التراخي في وضع القيود إلى ضياع البصيرة الآلية والوقوع في شرك النماذج الصندوقية المعتمة.

- نماذج LN البسيطة غير كافية لنمذجة الاستجابات المعقدة للشبكية بدقة. - النماذج الهائلة (كالمحولات والشبكات العميقة جداً) تلتقط العلاقات بدقة لكنها تفتقر للتفسير الآلي وتتطلب حجماً هائلاً من البيانات. - النماذج التلافيفية الدنيا المعتمدة في دراسات الشبكية تمثل نقطة توازن تمنح دقة عالية بأقل عدد ممكن من المعلمات وبأعلى درجات التفسير.

---

[16:47](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1007s) الإعداد التجريبي ومطابقة استجابات الخلايا العقدية

يشرح باكوس خطوات التجربة الفيزيولوجية التي تُجمع عبرها البيانات، حيث تُستخرج شبكية العين من الحيوان المخبري — وكان يُعتمد تاريخياً على سمندل الماء (Tiger salamander) قبل الانتقال مؤخراً إلى الفئران — وتوضع في طبق مزود بمصفوفة أقطاب كهربائية دقيقة (Multielectrode Array - MEA). تُستخدم أقطاب سلكية سلبية لتسجيل النشاط الكهربائي التلقائي والاستجابي لنبضات (Spikes) الخلايا العقدية، مع الحفاظ على الشبكية حية وتعمل لعدة ساعات عبر غمرها بمحلول ملحي فسيولوجي. بعد ذلك، تُعرض الشبكية لمثيرات بصرية اصطناعية أو مشاهد طبيعية. وتضمنت التجارب المبكرة محاكاة لحركات العين التثبيتية السريعة (Saccades) عبر هز الصور بمعدل يقارب مرة كل ثانية، بينما تستخدم التجارب الحالية مقاطع فيديو لمشاهد طبيعية مسجلة في الميدان.

يوضح باكوس أن المثير البصري يُقاس بالنسبة لمقاييس خلايا الشبكية؛ حيث تعادل مساحة الخلية ثنائية القطب حجماً يقارب بكسلاً واحداً، بينما تغطي الخلية العقدية بضعة بكسلات، في حين تستطيع بعض خلايا أماكرين الواسعة الامتداد عبر كامل مساحة الشبكية. يتم بعد ذلك ضبط نموذج الشبكة العصبية للتنبؤ بما إذا كانت الخلية العقدية ستطلق نبضة استجابة لكل مثير، وهو ما يمكن تصوره كمهمة تصنيف ثنائي أو تنبؤ بمعدل الإطلاق. وأظهرت النتائج أن نموذجاً صغيراً نسبياً من ثلاث طبقات تفوق بوضوح تام على نماذج LN الكلاسيكية: “تصل الدقة تقريباً إلى سقف الضجيج الذي يمكننا إيجاده عن طريق تكرار محفزات متطابقة.” وأثبتت الاختبارات أن نحو 8 أنواع من الخلايا في الطبقتين الأوليين كانت كافية للوصول إلى حد الاستقرار في التقاط البيانات لدى السمندل، كما نجحت البنية نفسها مع تعديل المعلمات وقنوات إضافية في التقاط استجابات الفئران، ونقلتها مختبرات أخرى (مثل مختبر تشيتشيلنسكي) لتسجيلات الرئيسيات غير البشرية والشبكية البشرية.

- استخدام مصفوفات الأقطاب المتعددة لتسجيل استجابات بضع عشرات من الخلايا العقدية أو أكثر بصورة متزامنة. - اعتماد محفزات تتراوح بين صور مهتزة بحركات تثبيتية إلى أفلام طبيعية حية مصورة ميدانياً. - النموذج المستخدم مكون من 3 طبقات، ويحتوي على قنوات وأنواع خلايا أقل من الشبكية البيولوجية الفعلية (نحو 8 أنواع في كل من الطبقتين الأولى والثانية للسمندل). - وصول قدرة النموذج التنبؤية إلى "سقف الضجيج" الفسيولوجي (Noise ceiling).

---

[20:03](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1203s) التفسير الآلي واكتشاف الخلايا البينية داخل بنية النموذج

يكشف باكوس عن المفاجأة الحقيقية التي ظهرت بعد تدريب هذه النماذج؛ فعلى الرغم من أن الشبكة دُرِّبت بطريقة الطرف-إلى-الطرف (End-to-End) لمطابقة المثيرات بالنبضات الصادرة عن الخلايا العقدية دون تلقي أي معلومات حول الطبقات الوسيطة، إلا أن فحص الحقول الاستقبالية للخلايا العصبية البينية الاصطناعية (Hidden units / Interneurons) داخل النموذج أظهر مفاجأة مذهلة. لقد طوّرت هذه الوحدات تلقائياً بنى مألوفة جداً لعلماء الأعصاب: مجالات استقبالية ذات تنظيم كلاسيكي للمركز والمحيط (Center-surround organization)، ومسارات زمنية متنوعة، وأحجام متفاوتة تتطابق مع خصائص الخلايا الحقيقية.

وللتحقق الصارم من هذا التوافق، قام الفريق بما يشبه "إدخال قطب كهربائي افتراضي في النموذج"؛ حيث قارنوا استجابات العصبونات البينية داخل النموذج باستجابات تسجيلات داخلية لخلايا شبكية حقيقية (عصبونات ثنائية القطب وخلايا أماكرين) جُمعت من تحضيرات سابقة تماماً لم يعرف النموذج عنها شيئاً مسبقاً. ونظراً لأن التنظيم الفسيفسائي للشبكية يحتوي على عصبون واحد فقط من نوع معين في كل موقع، لم يكن هناك سوى ثمانية مرشحين فقط في كل طبقة للمطابقة. وأسفرت المقارنة الكمية عن نتائج حاسمة؛ إذ بلغ معامل الارتباط الطبيعي بين عصبون حقيقي وآخر مشابه له في شبكية حقيقية حوالي 0.6 نتيجة التشويش الفسيولوجي، بينما وصل الارتباط بين عصبونات النموذج الاصطناعية والعصبونات البينية الحقيقية إلى أكثر من 0.5. ويعلق باكوس على هذا التحول الجذري في وظيفة النموذج التنبؤي بقوله: “وهذا بدوره غيّر هذه النماذج من مجرد أداة للتنبؤ بالاستجابة إلى شيء يمكننا اكتساب رؤى حقيقية منه.” وبذلك تحولت هذه الشبكات العصبية إلى مختبر افتراضي لتوليد فرضيات ميكانيكية دقيقة وقابلة للاختبار حول الحسابات الخفية داخل شبكية العين.

- معامل الارتباط بين الخلايا العصبية البينية البيولوجية الحقيقية يبلغ حوالي 0.6 بسبب الطبيعة العشوائية والضجيج الفسيولوجي. - معامل الارتباط بين الوحدات البينية المخفية في النموذج والخلايا الحقيقية فاق 0.5، مما يؤكد قرب النموذج من الحد الأقصى للمطابقة الممكنة بين الخلايا الحقيقية نفسها. - أثبتت التجربة قدرة التعلم العميق الموجه بالانحياز الاستقرائي على كشف آليات الدوائر العصبية الداخلية ذاتياً بمجرد مطابقة المدخلات والمخرجات النهائية.

[23:12](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1392s) التكيف مع إحصائيات المشهد وظواهر الاستجابة التنبؤية

يبدأ البروفيسور ستيفن باكوس بشرح الدور المحوري لشبكية العين، مؤكداً أنها لا تقتصر على مجرد نقل الإشارات الضوئية بل تعمل على التكيف الفعّال مع الإحصائيات المتغيرة للمشهد البصري لضغط البيانات وتوليد تمثيل أكثر كفاءة. تتكيف الشبكية مع الإضاءة، والتباين، والتغيرات المختلفة، والأنماط الزمانية والمكانية بهدف إبراز المعالم الجديدة في المشهد. كما أنها تقوم باكتشاف ميزات حرجة مثل اتجاه الحركة، والحركة التفاضلية (كأن يتحرك جسم باتجاه مختلف عن حركة العين نفسها)، أو عند انعكاس اتجاه الحركة فجأة.

تؤدي خلايا الشبكية أيضاً استجابات تنبؤية متعددة؛ فهي تستطيع استباق مسار جسم متحرك، وتوقع المثيرات الدورية المنتظمة، وتزداد حساسيتها تجاه جسم تحرك ثم توقف فجأة لتتنبأ باستمرار وجوده. يشير باكوس إلى أن كل هذه الظواهر دُرست على مدار عقود طويلة وتجارب مضنية باستخدام محفزات اصطناعية مبسطة، مما ترك تساؤلاً مفتوحاً حول ما إذا كانت نفس هذه الظواهر تحدث فعلياً تحت تأثير المشاهد والمثيرات الطبيعية المعقدة.

يوضح باكوس كيف اختبر فريقه قدرتهم على ملاءمة وتدريب نموذج حسابي حصرياً على مقاطع ومشاهد طبيعية، لمعرفة ما إذا كان هذا النموذج قادراً على التعميم ومحاكاة عقود من الظواهر المكتشفة في الأدبيات العلمية دون تدريبه المباشر عليها:

> “لكن الرسالة الجوهرية ثابتة للجميع، وهي أننا قمنا بملاءمة النموذج مع المشاهد الطبيعية فحسب، أليس كذلك؟ لقد اختبرنا عقوداً من الأدبيات حول هذه الظواهر لنرى ما إذا كان النموذج قادراً على التعميم ومحاكاتها رغم عدم تدريبه صراحةً عليها.”

- **التكيف مع التباين:** نجحت النماذج المدربة على المشاهد الطبيعية في التكيف مع التباين، بينما فشلت النماذج المدربة على الضوضاء البيضاء (White Noise) نظراً لافتقار الأخيرة لتغيرات التباين، مما يثبت أن قدرة النموذج على التعميم ترتبط باحتواء بيانات التدريب على المحفزات المحددة. - **تعديل زمن الاستجابة:** قام النموذج بتعديل زمن استجابة الخلايا بناءً على قوة وشدة المحفز البصري تماماً كما في البيولوجيا الحقيقية. - **خصائص غير خطية وتوقعات:** أظهر النموذج ظواهر مثل مضاعفة التردد، وخلايا تعكس قطبيتها، وخلايا تطلق نبضات قوية عند انتهاك التوقعات عبر عكس اتجاه المحفز، بالإضافة إلى استباق الحركة. - **استجابة المحفز المحذوف (Omitted Stimulus Response):** عند تقديم ومضات دورية متتالية وحذف ومضة منها، قامت الخلايا في النموذج بإطلاق إشارات تنبؤية في التوقيت الدقيق الذي كان يفترض أن تظهر فيه الومضة المحذوفة.

---

[26:47](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1607s) حساسية حركة الأجسام والحركة التفاضلية

ينتقل باكوس للتركيز على ظاهرة الخلايا الحساسة لحركة الأجسام (Object Motion Sensitive Cells - OMS)، وهي فئة من خلايا الشبكية تم تحديدها قبل حوالي عشرين عاماً. تتميز هذه الخلايا بقدرتها على الفصل والتمييز بين حركة الأجسام في البيئة وحركة العين الذاتية؛ فهي تستجيب بقوة للحركة التفاضلية (حركة جسم يتحرك أمام خلفية متحركة بسبب العين)، في حين يُكبت نشاطها عند حدوث حركة كلية للمشهد بالكامل ناتجة عن حركة العين وحدها.

يوضح باكوس أن الفريق واجه خيبة أمل أولية عند تدريب النموذج على صور طبيعية مرتجفة؛ إذ لم ينجح في إعادة إنتاج حساسية حركة الأجسام. لكنهم سرعان ما أدركوا أن الصور المرتجفة لا تتضمن بطبيعتها أي حركة تفاضلية، بل حركة شاملة للمشهد فقط. بمجرد استخدام أفلام طبيعية حقيقية تحتوي على أجسام تتحرك داخل المشهد كبيانات تدريب، استطاع النموذج محاكاة ظاهرة OMS بكفاءة عالية، مما رسخ القاعدة القائلة إن النموذج قادر على التقاط فئة المحفز واكتساب خواصها طالما أنها ممثلة داخل مجموعة التدريب.

```mermaid flowchart TD accTitle: محاكاة خلايا حساسية حركة الأجسام في النموذج accDescr: يوضح المخطط كيفية استجابة خلايا OMS للحركة التفاضلية وكبتها للحركة الكلية وتأثير طبيعة بيانات التدريب. subgraph StimulusTypes["أنواع المحفزات"] Global["حركة كلية (حركة العين)"] Diff["حركة تفاضلية (حركة جسم مقابل الخلفية)"] end subgraph ModelTraining["تدريب النموذج"] Jitter["صور مرتجفة (بدون حركة تفاضلية)"] --> Fail["فشل إظهار استجابة OMS"] NatMovies["أفلام طبيعية (تحتوي حركة تفاضلية)"] --> Success["نجاح محاكاة استجابة OMS"] end subgraph CellBehavior["استجابة خلايا OMS"] Diff -->|"تنشيط قوي"| OMSActive["إطلاق إشارات حساسية الحركة"] Global -->|"كبت النشاط"| OMSSuppressed["تثبيط الاستجابة"] end ```

---

[28:23](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1703s) التسجيل من القشرة البصرية وتتبع حركة العين في الواقع الافتراضي

يستعرض المحاضر كيفية توظيف هذه النماذج الدقيقة ذات الآليات الداخلية المطابقة للبيولوجيا لاكتشاف ظواهر عصبية جديدة. فإلى جانب تسجيلات شبكية العين، أجرى الفريق تسجيلات من القشرة البصرية الأولية للفأر باستخدام مصفوفات أقطاب كهربائية متعددة متطورة تُعرف باسم "نيوروبيكسلز" (Neuropixels). ونظراً لخلفية المختبر المتخصصة في الشبكية، كان تتبع حركة العين بدقة أمراً لا غنى عنه لإعادة بناء الصورة الشبكية الفعلية التي يراها الحيوان، إذ يستحيل معرفة المدخل البصري الحقيقي بدونه.

تعتمد التجربة على وضع الفأر ليركض على عجلة داخل بيئة واقع افتراضي أثناء مشاهدة مشاهد طبيعية. توضح التسجيلات أن عين الحيوان تتحرك باستمرار، وهو تعقيد بيولوجي كبير لا يظهر في تجارب أطباق الشبكية المعزولة، مما يجعل التحكم في المحفز البصري أمراً مستحيلاً وتتحول التجارب إلى استجابات شديدة التغير ظاهرياً:

> “والحقيقة هي أن المشكلة تكمن في أنه لا يوجد شيء اسمه تجربة متكررة حقاً. أليس كذلك؟ لا توجد حالة يكون لديك فيها نفس المحفز بالضبط مع نفس تاريخ حركات العين.”

- **التنبؤ الفردي:** مكّنت الشبكات العصبية التلافيفية (CNNs) الأكبر حجماً، المزودة بمعلومات مسار حركة العين والصورة الشبكية الدقيقة، من مطابقة الاستجابات بدقة عالية في المحاولات الفردية، متجاوزة أحياناً معامل الارتباط لمتوسط الاستجابات بين المحاولات غير المتطابقة. - **الفارق بين النماذج:** تعد نماذج القشرة البصرية أقل دقة إجمالاً مقارنة بنماذج الشبكية المعزولة، بسبب وجود مدخلات وعمليات دماغية وإدراكية إضافية معقدة في القشرة تتجاوز المدخلات البصرية البحتة، ومع ذلك تظل هذه النماذج مفيدة جداً وقادرة على التنبؤ.

---

[30:36](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1836s) تجارب في السيليكون: اكتشاف دور مزدوج بين الشبكية والقشرة

يتحدث باكوس عن دراسة قادها الباحث وادينغتون (Waddington) لإجراء تجارب حاسوبية دقيقة وفعالة في السيليكون (In Silico). قام وادينغتون باختبار نموذج القشرة البصرية لفحص حساسية حركة الأجسام (OMS)، وهي ميزة لم تكن قد وُصفت سابقاً في القشرة كما وُصفت في الشبكية. وبفضل قدرات النموذج الحاسوبي، استطاع تقديم محفزات حركة تفاضلية في اتجاهات متنوعة ومركزة بدقة فوق كل خلية عصبية افتراضية، وهو أمر شديد الصعوبة والتعقيد في التجارب الحية.

أظهرت المحاكاة في البداية وجود خلايا في نموذج القشرة تمتلك حساسية تفاضلية عالية تميزها عن الخلايا الأخرى غير الحساسة (Non-OMS). وعند فحص فئات حركية مختلفة، قارن الباحث بين محفزات "الارتعاش الدقيق" (Fine Jitter) ومحفزات "الحركة الانجرافية الأكبر" (Larger Drifting Motion) ذات الصلة البيولوجية الأكبر عند حركة الحيوان. كشفت المقارنة أن خلايا الشبكية تُفضل بوضوح محفزات الارتعاش، بينما تُفضل خلايا القشرة البصرية محفزات الحركة الانجرافية الأوسع.

عاد الباحث بعد ذلك للتحقق تجريبياً في المختبر الحي، فجاءت النتائج البيولوجية للشبكية والقشرة متطابقة تماماً مع التفضيلات التي تنبأ بها النموذج في السيليكون، مما قدم اكتشافاً جديداً لم يكن معروفاً مسبقاً. ويخلص باكوس إلى أن خلايا OMS في الشبكية يبدو أنها متخصصة في كشف مجرد وجود الجسم بحساسية فائقة وفورية، بينما تنقل القشرة البصرية تفاصيل مختلفة حول هوية هذا الجسم، مؤكداً أن الأنظمة تعمل بالتوازي بدلاً من أن يكون أحدهما مجرد اشتقاق للآخر.

---

[33:18](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1998s) تفكيك الحوسبة غير الخطية وطرق الإسناد للعصبونات البينية

يطرح باكوس السؤال الجوهري حول كيفية الاستفادة من هذه النماذج العصبية لفهم آليات الحوسبة نفسها: كيف تعمل الخلية العصبية المفردة داخل الدارة وما الذي تفعله تحديداً لإنتاج مخرجاتها؟ يوضح أن التأثير الوظيفي للخلية العصبية هو في جوهره تركيب رياضي لمرحلتين رئيسيتين: كل ما يدخل إلى الخلية ويُعرف بالمجال الاستقبالي (Receptive Field)، وكل ما ترسله الخلية إلى الخلايا اللاحقة ويُعرف بالمجال الإسقاطي (Projective Field).

لو كان النظام خطياً بالكامل، لكان حساب التأثير سهلاً للغاية عن طريق أخذ حاصل الضرب الخارجي للمجالين الاستقبالي والإسقاطي. ولكن نظراً للطبيعة شديدة اللاخطية للشبكية والدماغ، فإن قياس ذلك تجريبياً بالغ التعقيد. في المقابل، يوفر النموذج الحاسوبي إمكانية قراءة هذه العلاقات رياضياً من خلال حساب المشتقات: مشتقة استجابة الخلية بالنسبة للمدخلات، ومشتقة مخرجات الدارة الإجمالية بالنسبة لاستجابة تلك الخلية.

طور الفريق منهجاً لتوسيع ما يُعرف بـ "طرق الإسناد" (Attribution Methods)، التي توضح كيفية توجيه بكسلات الصورة للمخرجات النهائية، وتطبيقها مباشرة لتفسير دور الخلايا العصبية البينية (Interneurons). في النظم غير الخطية، تتغير مساهمة العصبون البيني في تشكيل الاستجابة بحسب المسار غير الخطي الذي سلكته الإشارة البصرية داخل المشهد، وحسب اتجاهات حساسية الخلايا البينية المختلفة المشاركة في تلك المعالجة.

[35:28](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=2128s) التدرجات المتكاملة وحساب مساهمة العصبونات البينية

يشرح البروفيسور ستيفن باكوس كيفية عزو التأثيرات داخل الشبكة العصبية باستخدام التدرجات، مشبّهًا مسألة الحساسية بالصعود على تلة؛ إذ يعتمد تحديد أي العصبونات يقدّم الحساسية على المسار والاتجاه الذي تسلكه نحو القمة. ولمعالجة مشكلة تفاعل التأثيرات غير الخطية وتوزيعها بدقة، يستشهد بالورقة البحثية التي نشرها موكوند سونداراراجان وزملاؤه عام 2017، والتي قدّمت نهج «التدرجات المتكاملة» (Integrated Gradients). يقوم هذا النهج على إجراء تكامل لقاعدة السلسلة متعددة المتغيرات على طول مسار مستقيم يبدأ من محفز أساسي صفري (Baseline) وصولاً إلى المحفز الفعلي، مع جمع التأثيرات الصغيرة الناتجة عن حاصل ضرب المجالات الاستقبالية بالمجالات الإسقاطية على امتداد هذا المسار. وتتميز هذه الطريقة بخاصية «الاكتمال»، حيث يضمن الجمع التراكمي لمساهمات جميع العصبونات البينية أن يُطابق الناتج الإجمالي تماماً.

يوضح باكوس كيف يُترجم هذا الأساس الرياضي عملياً داخل النموذج البيولوجي للشبكية لتحديد العصبونات المسؤولة عن تشكيل مخرجات محددة عند لحظة زمنية معينة. فإذا رُصدت استجابة خلية عقدية شبكية (Retinal Ganglion Cell)، تتيح هذه الحسابات تفكيك الاستجابة فورياً إلى مساهمات الخلايا ثنائية القطب (Bipolar Cells) المختلفة التي تغذيها، مميزاً بوضوح بين ما كان منها استثارياً وما كان تثبيطياً، بالإضافة إلى استبعاد الخلايا الخاملة التي لم تسهم بشيء يُذكر. هذا الفحص الآلي يتيح قراءة البنية الداخلية للشبكة بوضوح واستخلاص رؤى وظيفية دقيقة.

```mermaid flowchart LR accTitle: Integrated Gradients Computation accDescr: Diagram showing the flow from baseline stimulus to total output via multivariate chain rule integration over intermediate neurons.

subgraph Path ["مسار التكامل الخطي"] A["محفز صفري (Baseline)"] --> B["التكامل عبر المسار"] B --> C["محفز فعلي (Input)"] end

subgraph Cells ["العصبونات البينية"] C --> D["حاصل ضرب التأثيرات (استقبالي × إسقاطي)"] D --> E["خلايا ثنائية قطب استثارية (+)"] D --> F["خلايا ثنائية قطب تثبيطية (-)"] end

subgraph Output ["المخرج الكلي"] E --> G["استجابة الخلية العقدية الشبكية"] F --> G end ```

- يضمن التكامل الخطي للتدرجات المتكاملة أن مجموع مساهمات العصبونات البينية يساوي بدقة القيمة الإجمالية للمخرج. - التأثير الخطي الكلي يُمثل بحاصل ضرب المجال الاستقبالي في المجال الإسقاطي، بينما يتطلب التأثير غير الخطي جمع وتكامل التأثيرات الصغيرة تدريجياً. - “هذه طريقة، نظراً للطبيعة القابلة للتفسير ميكانيكياً لهذه النماذج، يمكنك الانتقال مباشرة من ملاءمة مشهد فعلي، واختبار الظواهر التي تحدث حاسوبياً، ثم توليد فرضية يمكنك العودة واختبارها،” هكذا علّق ستيفن باكوس على قدرة النماذج على الانتقال من المعطيات الحسابية إلى الفرضيات البيولوجية.

---

[37:51](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=2271s) فك شفرة استجابة المحفز المحذوف وتوليد الفرضيات آلياً

يتناول المحاضر ظاهرة بيولوجية عصبية محيرة فشلت النماذج السابقة في تفسير آليتها، وتُعرف باسم «استجابة المحفز المحذوف» (Omitted Stimulus Response). تتمثل هذه الظاهرة في تعريض العين لسلسلة دورية من الومضات الضوئية (وميض، وميض، وميض...) ثم تخطي وميض واحد فجأة، لتطلق الخلايا العصبية نبضاتها تماماً في الزمن الذي كان متوقعاً للوميض المحذوف. وتعد هذه الاستجابة سلوكاً تنبؤياً لافتاً من الشبكية، إذ يتغير توقيت إطلاق النبضات العصبية بتغير تردد سلسلة الومضات السابقة ومعدلها الزمني.

عند فحص نموذج الشبكية أثناء حدوث هذه الاستجابة، تبيّن أن السلوك يُقاد عبر مزيج من ثلاثة مسارات وخلايا ثنائية القطب؛ إذ يعمل نوعان من الخلايا على دفع الاستجابة النبضية المتكررة للومضات السابقة، بينما يتدخل نوع ثالث ليحفز الانفجار العصبي التنبئي عند غياب الوميض. وتبيّن أن التغير في نسبة المساهمة بين خليتين مختلفتين مع اختلاف التردد هو المسؤول المباشر عن إزاحة زمن الاستجابة في الوقت. ولاختبار صحة هذا الاستنتاج، جرى بناء نموذج مصغر اختُزلت فيه الشبكة إلى تلك المسارات الثلاثة فقط، وأثبت هذا النموذج المصغر قدرته الكاملة على إعادة إنتاج الاستجابة وتغيراتها الترددية بدقة، مما يمثل توليداً تلقائياً لفرضيات قابلة للاختبار المعملي.

- الظاهرة تنبؤية بامتياز؛ إذ تعكس قدرة دارات الشبكية على توقع التوقيت الزمني للمحفزات بناءً على التردد السابق. - اختزال الشبكة إلى الأنواع الثلاثة من الخلايا ثنائية القطب كان كافياً لتكرار الاستجابة المتغيرة حاسوبياً. - النموذج لا يكتفي بإعادة الإنتاج السلوكي، بل يقدّم آلية سببية بيولوجية دقيقة تُجيب عن تساؤلات عجزت النماذج السابقة عن حلها.

---

[39:51](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=2391s) التفعيلات مقابل المساهمات ومسألة الإلغاء بين الاستثارة والتثبيط

ينتقل باكوس لمناقشة أحدث التطورات في قابلية التفسير الميكانيكي لطرح أسئلة أكثر تعقيداً، محذراً من أن معرفة ما تفعله كل خلية عصبية لا تقدم إجابة كاملة عن كيفية عمل الحسابات. لتوضيح ذلك، استعرض تجربة لتحريك شريط ذهاباً وإياباً في فضاء أحادي البعد عبر الزمن؛ حيث تُظهر تسجيلات الشبكية نشاطاً واسعاً ينعكس كاستثارة وتثبيط. وفي مصطلحات تعلم الآلة، يُعرف هذا النشاط الواسع باسم «التفعيلات» (Activations). لكن عند حساب «المساهمات» (Contributions) — أي التأثيرات السببية الفعلية على خلية عقدية محددة — تظهر المساهمة أكثر تفرقاً وتشتتاً (Sparse) بشكل هائل مقارنة بالتفعيلات. وتكرر هذا النمط أيضاً عند تحليل شبكات الرؤية الحاسوبية مثل شبكة «ريزنت» (ResNet)، حيث تبيّن وجود عدد كبير من العصبونات التي تُفعَّل بقوة لكنها في الواقع لا تؤثر إطلاقاً على المخرج النهائي.

يعزو باكوس هذا التناقض إلى احتمالين: إما أن الإشارة لم تصل إلى عتبة التنشيط للخلايا اللاحقة، أو أن هناك استثارة قوية صادرة عن مسار معين قابلها تثبيط قوي متزامن عبر مسار آخر فألغى أحدهما الآخر تماماً. ويشير إلى أن هذا الإلغاء هو جوهر آليات بيولوجية مثل «الحساسية لحركة الأجسام» (Object Motion Sensitivity)، حيث تُقمع الحركة المعممة المتزامنة مع حركة العين عبر التثبيط، ليبرز التثبيط كعنصر محدد للحساب العصبي وليس مجرد تعطيل.

```mermaid flowchart TD accTitle: Activation vs Contribution Discrepancy accDescr: Flowchart showing why broad neuron activations result in sparse causal contributions due to thresholds and cancellation.

A["محفز بصري (مثل شريط متحرك)"] --> B["تفعيلات واسعة (Activations)"]

subgraph Mechanisms ["آليات تصفية الإشارة"] B --> C{"هل تجاوزت العتبة؟"} C -- "لا" --> D["إخماد الإشارة وعدم التأثير"] C -- "نعم" --> E["مسار استثاري قوي (+)"] B --> F["مسار تثبيطي متزامن (-)"] E & F --> G["إلغاء متبادل (Cancellation)"] end

G --> H["مساهمات متفرقة وسببية فعلية (Sparse Contributions)"] D --> H ```

- هناك تباين شاسع بين التفعيلات والآثار السببية؛ فالكثير من الخلايا العصبية تنشط دون أن تسهم فعلياً في اتخاذ القرار. - كشف حركة الأجسام يعتمد كلياً على قمع الإشارات المتزامنة الناتجة عن حركة العين عبر التثبيط المتبادل. - شبكات التعلم العميق في الرؤية الحاسوبية تشترك مع الدارات العصبية الحيوية في هذه الخاصية التشتتية للمساهمات.

---

[42:43](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=2563s) تحليل المسارات الفردية والحقول الاستقبالية الديناميكية

يوضح باكوس كيف قاده العمل بالتعاون مع باحث يشرف عليه إلى تجاوز تحليل العصبونات المنفردة وتطوير أداة لتتبع «المسارات الفردية» (Individual Pathways)، والتي تُعرّف كسلسلة من الاتصالات العصبية المتتابعة التي تربط عصبوناً بآخر وصولاً إلى المخرج. وباستخدام قاعدة السلسلة والتدرجات المتكاملة، أمكن الحفاظ على خاصية الاكتمال بحيث يُعادل مجموع مساهمات كافة المسارات نشاط العصبون بالكامل. وفي تجربة على شبكة بسيطة مخصصة للتعرف على الأرقام، فحص الباحثون حجم الإلغاء المتبادل بين التنبيه والتثبيط عبر المسارات الفعالة، واكتشفوا وجود عامل تضخيم وإلغاء يصل إلى 46 ضعفاً في الشبكة المدربة تقليدياً. وعند محاولة تنظيم أوزان الشبكة (عبر L1 أو L2) لتقليص هذا الإلغاء، أمكن خفضه إلى 18 ضعفاً فقط كحد أدنى؛ حيث انهارت دقة الشبكة وفشلت تماماً عند محاولة تقليله عن ذلك، مما يشير إلى أن الحساب داخل الشبكة يستلزم وجود هذا التنافس الحاد بين التنبيه والتثبيط.

أما في تطبيق هذه الأداة على شبكية الفأر، فقد جرى فحص «الحقول الاستقبالية اللحظية» (Instantaneous Receptive Fields) — وهي تدرج الاستجابة بالنسبة للمدخلات عند لحظة زمنية معينة، والتي تتغير ديناميكياً مع كل مثير، فتتحول الخلايا من حالة التشغيل (ON) إلى الإيقاف (OFF) أو تصبح ثنائية الطور. ومن خلال تحليل مساهمة المسارات، تمكن الفريق من ربط التغيرات اللحظية في حساسية الخلية العصبية بتبدل هيمنة مسارات معينة؛ حيث يسود مسار محدد (مثل نوع الخلية ثنائية القطب 12) عند مثير ما، بينما تتفوق مسارات أخرى عند مثيرات مختلفة، ليتشكل الحقل الاستقبالي النهائي بدقة كحاصل جمع لتلك المسارات النشطة في تلك اللحظة.

- أظهرت شبكة التعرف على الأرقام حاجة بنيوية لوجود إلغاء بمقدار 18 ضعفاً على الأقل بين التنبيه والتثبيط لتعمل بكفاءة دون انهيار. - يوفر تحليل المسارات الفردية رؤية جديدة كلياً لا يمكن الحصول عليها من مجرد دراسة العصبونات المفردة أو نقاط الاشتباك العصبي بمعزل عن سياقها الشبكي. - “يبدو أنه، على الأقل مع طريقة التدريب هذه، يلزم وجود إلغاء بمقدار 18 ضعفاً بين التنبيه والتثبيط لجعل هذه الشبكة تعمل،” هكذا بيّن ستيفن باكوس ضرورة الإلغاء المتبادل في أداء الشبكات العصبية.

[46:44](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=2804s) ختام المحاضرة: القابلية للتفسير الآلي ونماذج الشبكية

اختتم البروفيسور ستيفن باكوس محاضرته بتأكيد قوة نماذج الشبكات العصبية الاصطناعية المطبقة على المعالجة البصرية المبكرة، موضحاً أنها لا تقتصر على الدقة العالية وقابلية التعميم، بل تتميز بقابليتها للتفسير الآلي (mechanistic interpretability). وأشار إلى أن هذه النماذج تتيح اكتشاف ظواهر بصرية وبيولوجية جديدة، وتسمح للعلماء بتوليد فرضيات ملموسة حول آليات عمل الدوائر العصبية البيولوجية، والتي تظل بطبيعة الحال فرضيات تتطلب التحقق والتجريب المعملي. وبيّن باكوس كيف أن الشبكية تمثل بيئة اختبار مثالية وأساسية لدراسة الحوسبة العصبية على مستوى المكونات الأولية الدقيقة، موجهاً شكره لطلابه وزملائه الباحثين:

> “وكما بدأت الشبكية كأرضية اختبار لفهم كيفية عمل الحوسبة العصبية، أعتقد أن هذه الأساليب التي تصل إلى الأساسيات، أي مستوى الخلايا والمشابك والمرشحات، هي نقطة انطلاق مهمة لفهم كيفية عمل الشبكات البيولوجية والاصطناعية على حد سواء.”

```mermaid flowchart LR accTitle: "استخدام النماذج العصبية لتفسير الشبكية" accDescr: "مخطط يوضح انتقال الفهم من تدريب الشبكات إلى تفسير الآليات البيولوجية واختبار الفرضيات"

A["تدريب نماذج الشبكات العصبية"] --> B["تطبيق التفسير الآلي"] B --> C["توليد فرضيات حول الدوائر العصبية"] C --> D["الاختبار والتحقق المعملي"] ```

[48:06](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=2886s) الحركة التفاضلية، ومحدودية المحفز، والتباين البيولوجي

افتتحت جلسة الأسئلة باستفسار من أحد الحضور حول كيفية انتقال النماذج من الفشل إلى النجاح في التقاط الحركة التفاضلية (differential motion) وتمييزها عن الحركة الكلية للمشهد (global motion)، وما إذا كان ذلك قد تم عبر تعديل المعمارية بإضافة طبقات جديدة أم عبر تدريب النموذج على محفزات بصرية مختلفة. أوضح باكوس أن الحل لم يكن بتعديل الطبقات، بل بتغيير طبيعة المحفز؛ فعند تدريب النموذج ببيانات تفتقر إلى حركة الأجسام المستقلة، عجز عن إيجاد البنية الوظيفية الصحيحة، بينما نجح فور تزويده بمشاهد تحتوي على تلك الخصائص الديناميكية. وعلّق باكوس بأن التركيب البيولوجي المعروف يتضمن مسار إثارة ثنائي الطبقات لتوليد حساسية غير خطية شديدة بالتوازي مع مسار تثبيطي، وأن دراسة الفروق التفصيلية بين النموذج الناجح والفاشل تعد فكرة بحثية واعدة.

وردّاً على سؤال آخر بشأن سبب وصول معامل الارتباط بين الخلايا العصبية البينية الحقيقية والنماذج إلى نحو 0.5 أو 0.6 فقط، بيّن باكوس أن هذا النقص النسبي في التطابق يعود في المقام الأول إلى الضجيج والتباين البيولوجي الطبيعي (biological variability)، خاصة وأن المقارنات أُجريت عبر عينات من حيوانات مختلفة، بالإضافة إلى عوامل تجريبية مثل درجات الحرية الدورانية التي يصعب مطابقتها بشكل كامل عبر التجارب.

[50:14](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=3014s) معايير اختيار المحفز الطبيعي واستكشاف الحساسية الضوئية والطيفية

طرح أحد الحضور سؤالاً حول كيفية تحديد المشهد الطبيعي وماهية المحفزات الكافية لتمكين النموذج من اكتشاف ظاهرة عصبية معينة دون إغفال أي سلوك خفي. اعترف باكوس بأن هذه المسألة ما زالت سؤالاً مفتوحاً في أبحاث الرؤية والقشرة المخية، مشيراً إلى إمكانية دراستها برمجياً عبر تدريب نموذج لاستعادة وظائف نموذج آخر وتحديد أقصر محفز وأكثره كفاءة لتحقيق ذلك. وشدد على المبدأ الأساسي: إذا لم يتضمن المحفز خصائص تدفع الخلية لتجاوز عتبة التنشيط الخاصة بها، فإن النموذج لن يمتلك المعلومات الإحصائية اللازمة لاستنتاج وجود تلك العتبة أو تحديد ذلك الوزن المشبكي بدقة.

وتطرق النقاش إلى تأثير شدة الإضاءة والطيف اللوني، حيث أوضح باكوس أن تجاربهم استهدفت الرؤية النهارية ولم تنزل إلى المستويات الخافتة التي تُفعّل الخلايا العصوية (rods)، مما يعني أن النماذج الحالية لا تعكس خصائص الرؤية الليلية. أما من ناحية الطيف، فبينما اعتمدت دراسات السمندل على محفزات غير لونية لعدم التركيز على تلك السمات، فإن التجارب الأحدث على الفئران بدأت تستخدم محفزات طيفية متطورة تُمكّن من عزل مدخلات المخاريط (cones) العادية عن الخلايا العقدية الشبكية الحساسة ذاتياً للضوء والمحتوية على الميلانوبسين (melanopsin-expressing retinal ganglion cells).

[53:08](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=3188s) مطابقة أنواع الخلايا، واستخدام الـ Connectome، ودقة تتبع حركة العين

أثار أحد الحضور تساؤلاً حول قدرة النماذج على مطابقة العشرات من أنواع الخلايا الفرعية في الشبكية بدقة واحد لواحد دون الوقوع في التخصيص المفرط أو تغطية مساحة فرعية مكررة. وأوضح باكوس أن هذا التحدي حقيقي، إذ قد تؤدي زيادة السعة إلى فرط التحديد (over-specification). وكحل لهذه المعضلة، أكد أنهم يعتمدون على دمج المعرفة التشريحية المسبقة مثل خريطة الاتصالات العصبية الحقيقية (retinal connectome):

> “لقد نظر الباحثون في الاتصالات الحقيقية، وبعض الأشياء التي قمنا بها هي محاولة تقييد النماذج لتناسب ذلك الـ 'كونيكتوم' وتناسب خصائص الاستجابة. وباستخدام دالة خسارة متعددة الأبعاد، يمكننا القيام بذلك.”

وفيما يخص تتبع حركة العين في الفئران ومدى دقتها لتجنب إفساد بيانات التدريب، أوضح باكوس: - يتم تتبع حركة العين تجريبياً باستخدام نظام بصري يعتمد على الأشعة تحت الحمراء وإضاءة LED تحت حمراء مخصصة. - يحقق نظام التتبع دقة تقل عن درجة زاوية واحدة (sub-degree precision)، وهي دقة ممتازة جداً بالنسبة للنماذج الحيوانية كالفئران. - أظهرت النتائج أن تدريب النماذج على مشاهد مصححة بحركة العين أدى إلى تحسن كبير مقارنة بالمشاهد غير المصححة، لأن الصورة المسقطة على الشبكية تكون أقرب إلى الواقع الفيزيائي.

```mermaid flowchart TD accTitle: "دمج بيانات التتبع والكونيكتوم في تدريب النموذج" accDescr: "يوضح تدفق المحفزات المصححة وتطبيق قيود الاتصال العصبي عبر دالة خسارة متعددة الأبعاد"

subgraph Input_Processing["معالجة المدخلات"] I1["محفزات بصرية طبيعية"] I2["تتبع العين بالأشعة تحت الحمراء (< 1°)"] I2 -->|"تصحيح حركة المشهد"| I1 end

subgraph Model_Constraints["تدريب النموذج بالقيود البيولوجية"] I1 --> M["نموذج الشبكة العصبية"] C["الكونيكتوم الحقيقي للشبكية"] --> L["دالة خسارة متعددة الأبعاد"] M --> L end

L --> O["تمثيل دقيق لأنواع الخلايا وتفادي فرط التخصيص"] ```

[56:32](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=3392s) النمذجة عبر الأنواع ومشاركة مجموعات البيانات العامة

أجاب باكوس عن سؤال حول مدى الحاجة إلى تعديل بنية النماذج وافتراضاتها عند الانتقال من دراسة السمندل إلى الفئران أو الرئيسيات، مؤكداً أن شبكيات الفقاريات تتمتع بدرجة عالية من التشابه الهيكلي والتطوري، لدرجة أن نماذج الرئيسيات استندت مباشرة إلى نماذج السمندل بعد إعادة ضبط المعاملات فقط. ولم تقتصر الإضافات في نموذج الفأر على محاكاة الشبكية بذاتها، بل هدفت إلى زيادة التفاصيل البيولوجية لتغذية النماذج اللاحقة للقشرة المخية البصرية التي تتدرب على مخرجات الشبكية.

وفي ختام الجلسة، دعا منظم الندوة الحضور للاستفادة من توفر البيانات والنماذج في إطار أهداف الدورة التدريبية ("الذكاء الاصطناعي والبيانات للعلم"). وأكد باكوس أن جميع مجموعات البيانات المستخدمة، بما في ذلك مقاطع المحفزات ونماذج الشبكات المدربة، متوفرة ومرفقة بروابط داخل الأوراق البحثية المنشورة، مشجعاً الطلاب الراغبين في تنفيذ مشاريع فصلية على استكشاف أسئلة محددة وقابلة للإنجاز، مثل دراسة كفاءة المحفزات في استخلاص خصائص الخلايا الحسابية.

[59:10](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=3550s) آفاق القابلية للتفسير الآلي ومقارنة النماذج القشرية القادمة

اختتم البروفيسور ستيفن باكوس إجابته بالإشارة إلى الجدوى العملية لتطبيق أساليب التفسير، مشيراً إلى تنوع المناهج المتاحة والفرص البحثية المفتوحة أمام الباحثين في هذا المجال، حيث قال: "أعتقد أن هناك مجموعة من الأسئلة التي يمكن للمرء أن..." قبل أن يتدخل منظم المحاضرة لتقديم الشكر وتوجيه إعلان للطلاب حول الجلسات المقبلة. أعلن المنظم أن المحاضر دان يامينز سيحل ضيفاً بعد أسبوعين للحديث عن النماذج القشرية (cortical models)، موضحاً أن منهجه يختلف تماماً عن منهج باكوس القائم على المطابقة المباشرة بين الخلايا العصبية البيولوجية وعقد الشبكة العصبية الاصطناعية.

أوضح المنظم الفارق الجوهري بين النموذجين، مؤكداً أن مقاربة دان يامينز لا تتطلب وجود خلية حقيقية تقابل بدقة كل عقدة حسابية في النموذج، مما يفتح الباب لمقارنة فلسفية وعلمية مثيرة بين المدرستين، حيث قال المنظم: "وفي الواقع، هم يستخدمون نهجاً مختلفاً تماماً. فهم لا يعتمدون على وجود خلية فعلية تطابق خلية عصبية تطابق عقدة معينة." واختتمت المحاضرة بدعوة الحاضرين للتصفيق وتحية ستيفن باكوس على عرضه التقديمي المتميز.

- **المحاضرة القادمة للطلاب**: استضافة دان يامينز بعد أسبوعين لمناقشة النمذجة القشرية. - **الاختلاف المنهجي**: عدم الاعتماد على تطابق أحادي بين العقد الحسابية والخلايا البيولوجية في النماذج القشرية، على عكس النماذج الدقيقة المتبعة في شبكية العين.

## Notable quotes > [46:44](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=2804s) كما بدأت الشبكية كأرضية اختبار لفهم كيفية عمل الحوسبة العصبية، أعتقد أن هذه الأساليب التي تصل إلى الأساسيات، أي مستوى الخلايا والمشابك والمرشحات، هي نقطة انطلاق مهمة لفهم كيفية عمل الشبكات البيولوجية والاصطناعية على حد سواء. — ستيفن باكوس

> [11:41](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=701s) في الواقع، كانت الشبكات العصبية التلافيفية مستوحاة في الأصل من النظام البصري. — ستيفن باكوس

> [28:23](https://www.youtube.com/watch?v=bt-R1RNc-5k&t=1703s) والحقيقة هي أن المشكلة تكمن في أنه لا يوجد شيء اسمه تجربة متكررة حقاً. أليس كذلك؟ لا توجد حالة يكون لديك فيها نفس المحفز بالضبط مع نفس تاريخ حركات العين. — ستيفن باكوس

## Mentioned Stephen Baccus, Brian, Nares, Niru Maheswaranathan, Lane McIntosh, Surya Ganguli, Mukund Sundararajan, Waddington, Dan Yamins, Stanford University, Tiger salamander, Mouse, Non-human primates, Chichilnisky Lab, CNN, LN model, LN-LN model, Transformer, ResNet, Neuropixels, Integrated Gradients, Retinal Ganglion Cells, Bipolar Cells, Amacrine Cells, Horizontal Cells, Photoreceptors, Object Motion Sensitive Cells, Connectome

## Video description For more information about Stanford’s graduate programs, visit: https://online.stanford.edu/graduate-education

This lecture is from Stanford EE292R AI and Data for Science, and it covers mechanistically interpretable models of computation in the early visual system.

Follow the course schedule: https://aida4sci.stanford.edu/schedule.html#fall-2026

Speaker: Stephen Baccus, Professor of Neurobiology at Stanford University

#ComputationalNeuroscience #MechanisticInterpretability #Neuroscience

[Source](https://www.youtube.com/watch?v=bt-R1RNc-5k)

中文简报

巴库斯利用卷积神经网络解析视网膜计算机制 极简卷积神经网络模型证明,仅靠匹配自然场景的输入与输出,便足以揭示中间神经元的结构,并为生物回路生成精确的机制假说。 斯蒂芬·巴库斯(Stephen Baccus)探讨了如何利用复杂度降至最低的卷积神经网络,来模拟视网膜计算机制及其对复杂自然场景的响应。他阐明了模型内部的中间单元在仅通过神经节细胞输出进行端到端训练后,如何自发形成与真实神经元(如双极细胞和无长突细胞)相对应的感受野和结构。他还解释了统计适应、物体运动敏感性以及遗漏刺激响应的机制,并运用积分梯度等机器学习可解释性技术,剖析了单一通路的作用以及兴奋与抑制之间的相互抵消。 视网膜的镶嵌解剖结构与卷积神经网络高度吻合,端到端训练模型中的中间单元发展出了与真实神经元相媲美的中心-周边感受野,相关系数超过0.5。 (20:03) 仅在自然场景片段上训练的神经网络模型成功实现了泛化,模拟了数十年来通过人工刺激发现的生物学现象,如对比度适应、运动预测及遗漏刺激响应。 (23:12) 计算模拟揭示了物体运动敏感性方面细微的功能差异:视网膜细胞偏好微小的抖动刺激以检测物体的存在,而视觉皮层细胞则偏好更宽泛的漂移运动刺激以传递特征细节。 (30:36) 应用积分梯度追踪单一通路表明,神经网络活动需要在兴奋性与抑制性信号之间实现至少18倍的相互抵消,以在不崩溃的情况下维持计算精度。 (42:43)

Reading summary

يقدم البروفيسور ستيفن باكوس إطاراً حسابياً يبيّن أن استخدام الشبكات العصبية التلافيفية الدنيا المدربة على مشاهد طبيعية يتيح فك شفرة المعالجة البصرية في شبكية العين بدقة تقترب من الحدود الفسيولوجية، مما يحوّل هذه النماذج إلى أداة للتفسير الآلي واكتشاف آليات الدوائر العصبية. تناظر بنية الشبكية مع الشبكات التلافيفية الدنيا (11:41) يوضح ستيفن باكوس أن التنظيم الفسيفسائي لخلايا الشبكية والتسلسل الهرمي لنقل الإشارة—من المستقبلات الضوئية عبر الخلايا ثنائية القطب وأماكرين وصولاً إلى الخلايا العقدية—يناظران رياضياً وهيكلياً الطبقات والقنوات في الشبكات العصبية التلافيفية (CNNs). وبدلاً من الاقتصار على النماذج الخطية-اللاخطية الكلاسيكية غير الكافية أو النماذج فائقة الضخامة المفتقرة للتفسير، توفر «النماذج التلافيفية الدنيا» نقطة توازن تستفيد من الانحياز الاستقرائي المستمد من البيولوجيا لضبط المعلمات ببيانات تجريبية أقل. وعند تدريب نموذج من ثلاث طبقات بطريقة الطرف-إلى-الطرف لمطابقة استجابات الخلايا العقدية لدى سمندل الماء، طوّرت الوحدات البينية داخل النموذج تلقائياً مجالات استقبالية ذات تنظيم كلاسيكي للمركز والمحيط. وعند قياس التطابق مع تسجيلات حقيقية لخلايا ثنائية القطب وأماكرين، فاق معامل الارتباط 0.5، وهو ما يقترب من سقف الضجيج الفسيولوجي الطبيعي البالغ نحو 0.6 بين الخلايا البيولوجية الحقيقية ذاتها. التدريب بالمشاهد الطبيعية وحساسية حركة الأجسام (23:12) أثبتت التجارب أن تدريب النموذج حصرياً على مشاهد وأفلام طبيعية مكّنه من التعميم ومحاكاة ظواهر عصبية دُرست لعقود بمحفزات اصطناعية دون تدريبه المباشر عليها، ومنها التكيف مع التباين، وتعديل زمن الاستجابة وفق قوة المثير، وتوقع المثيرات الدورية عبر إطلاق استجابة تنبؤية دقيقة عند حذف ومضة محددة (Omitted Stimulus Response). وفي المقابل، فشل النموذج في محاكاة خلايا حساسية حركة الأجسام (OMS) عند تدريبه على صور طبيعية مرتجفة فقط؛ نظراً لأن الارتجاف يمثل حركة كلية لكامل المشهد تعكس حركة العين. وبمجرد تزويد التدريب بأفلام طبيعية تحتوي على أجسام تتحرك باستقلالية، التقط النموذج سلوك خلايا OMS التي تُثار بقوة عند رصد الحركة التفاضلية وتُكبت عند حدوث حركة المشهد الكلية. التدرجات المتكاملة والتنافس الحاد بين الاستثارة والتثبيط (35:28) لتفكيك الحسابات داخل الدوائر العصبية غير الخطية، وظف الفريق أسلوب «التدرجات المتكاملة» لعزو مخرجات الخلية العقدية بدقة إلى حاصل ضرب المجالات الاستقبالية والإسقاطية للخلايا البينية. وكشف هذا التحليل وجود فجوة واسعة بين التفعيلات العصبية (Activations) والمساهمات السببية الفعلية (Contributions)؛ فالكثير من الخلايا العصبية تنشط بقوة دون أن تؤثر على المخرج النهائي، إما بسبب عدم تجاوز عتبة التنشيط أو نتيجة إلغاء متبادل بين مسارات استثارية وتثبيطية متزامنة. ومن خلال تطوير أدوات تتبع المسارات الفردية، كشفت التجارب على شبكة رقمية عن وجود إلغاء متبادل بين التنبيه والتثبيط يصل إلى 46 ضعفاً في النماذج القياسية، ولا يمكن خفضه تنظيمياً عن 18 ضعفاً دون انهيار أداء الشبكة بالكامل. وفي شبكية الفأر، أظهر تحليل المسارات أن الحقول الاستقبالية اللحظية تتغير ديناميكياً بين حالات التشغيل والإيقاف بحسب تبدل هيمنة مسارات خلايا ثنائية القطب النشطة في كل لحظة. التجارب السيليكونية وتكامل القشرة مع الكونيكتوم (30:36) أتاح إجراء التجارب الحاسوبية في السيليكون (in silico) اختبار فرضيات ميكانيكية عبر تقديم محفزات يصعب تطبيقها معملياً بدقة متناهية. وأظهرت مقارنة الاستجابات الحركية أن خلايا OMS في الشبكية تفضل محفزات الارتعاش الدقيق لكشف مجرد وجود الجسم، بينما تفضل القشرة البصرية الأولية محفزات الحركة الانجرافية الأوسع لنقل تفاصيل هويته، وهي تفضيلات تنبأ بها النموذج وتأكدت لاحقاً بالتجارب الحية عبر مساري عمل متوازيين. وللتغلب على مخاطر فرط التخصيص عند مطابقة العشرات من أنواع الخلايا العصبية، يعتمد الباحثون على فرض قيود تشريحية مستمدة من خريطة الاتصالات العصبية الحقيقية (retinal connectome) عبر دوال خسارة متعددة الأبعاد، بالتزامن مع تتبع حركة عين الحيوان بدقة تقل عن درجة زاوية واحدة لإعادة بناء الصورة الشبكية الحقيقية بدقة. تخلص المحاضرة إلى أن النمذجة التلافيفية المقيدة ببيولوجيا الشبكية تتيح الانتقال من التنبؤ المجرد إلى الفهم السببي وتوليد الفرضيات الآلية؛ ومع ذلك، تظل كيفية اختيار المحفزات المثلى لاستخلاص كافة الوظائف الخفية، ومدى توافق هذا النهج المعتمد على المطابقة الخلوية المباشرة مع النماذج القشرية الأكثر تجريداً، مسائل بحثية قائمة ومفتوحة للنقاش.

精炼阅读摘要

斯坦福大学教授 Stephen Baccus 指出,利用融入视网膜马赛克镶嵌与层级结构的极小卷积神经网络(Minimal CNN),不仅能在自然场景刺激下以接近噪声上限的精度预测神经元反应,还能使模型内部的隐藏单元自发对齐真实的中间神经元,从而将深度学习转化为可进行因果机制解释与假设生成的虚拟生物实验室。 视网膜结构与极小卷积网络的生物学映射 (11:41) 传统感知神经科学长期依赖线性-非线性(LN)模型,但双极细胞突触终末的电压门控钙通道等非线性阈值,使得简单线性近似无法应对复杂刺激。Baccus 团队自 2016 年起将卷积神经网络引入早期视觉研究,发现视网膜的生理特征与 CNN 结构存在自然映射:视网膜细胞在空间中呈马赛克式规则镶嵌,数学上等价于卷积核在视野中的滑动;约 5 种主细胞衍生出的十余种双极细胞与数十种无长突细胞、神经节细胞,则对应着卷积层内的多通道特征滤波。 面对超大规模黑盒模型(如深层网络或 Transformer)对数据极度渴求且缺乏可解释性的弊端,研究团队提出了介于其间的“极小卷积模型”(Minimal CNN)。该架构通过引入视网膜解剖层级和突触动力学等归纳偏置(Inductive Bias),在蝾螈与小鼠实验中仅用约 3 层结构、每层约 8 种细胞类型,便在预测神经节细胞脉冲序列时达到了生理噪声上限,实现了表达能力与机械可解释性的平衡。 端到端训练下隐藏单元自发涌现真实生物机制 (20:03) 尽管模型仅通过“自然场景输入到神经节细胞输出”的端到端方式训练,未注入任何中间层先验,但模型内部的人工隐藏单元(中间神经元)自发演化化出了经典的感受野中心-周边拮抗(Center-surround)结构与多样的时域响应。当研究人员将“虚拟电极”插入网络,把隐藏单元与此前独立记录的双极细胞及无长突细胞的生理信号比对时,两者相关系数超过 0.5;而两颗真实生物神经元之间的实测相关系数受生理噪声影响也仅约为 0.6。 更为关键的是,仅基于自然场景训练的模型能够自动泛化并复现神经科学界数十年间发现的非线性现象。例如在“遗漏刺激响应”(Omitted Stimulus Response, OSR)中,规律闪光序列突然缺失一次时,模型中的神经元能够在预期时间点自发发放预测性脉冲;此外,模型还展现了对比度自适应、频率倍增以及反转刺激方向时的预期违背放电,前提是训练数据中必须包含相应的动态特征。 微分运动检测与视网膜皮层的并行计算分工 (26:47) 在物体运动敏感细胞(OMS)的研究中,模型揭示了训练刺激生态真实性的决定性作用。早期利用抖动图像训练的模型未能习得 OMS 特征,因为整幅图像的平移仅包含模拟眼动的全局运动;而改用包含物体独立位移的自然影片训练后,模型成功再现了对背景与物体相对运动强烈激活、对全局背景平移予以抑制的 OMS 机制。这证实了模型捕获复杂计算特征的前提是训练集包含了对应的统计模式。 借助 Neuropixels 探针与低于 1 度的红外眼动追踪技术,研究团队进一步将虚拟实验拓展至小鼠初级视觉皮层。在硅片(In Silico)模拟与活体实验对照中,研究人员发现 OMS 计算在视网膜与大脑皮层间存在功能分工:视网膜 OMS 细胞对微小抖动(Fine Jitter)更敏感,承担快速、高灵敏度的“物体存在检测”;而皮层 OMS 神经元则偏好大尺度漂移运动(Drifting Motion),侧重编码物体身份与更丰富的动态细节,二者呈并行处理而非单向派生关系。 积分梯度归因与兴奋抑制相互抵消的稀疏因果 (35:28) 为了从数学上解构单细胞在环路中的因果贡献,团队引入了基于多变量链式法则的“积分梯度”(Integrated Gradients)方法。该方法沿基线至实际输入的直线路径进行积分,不仅满足完备性公理(所有中间单元贡献之和严格等于总输出),而且能够将特定神经节细胞的输出瞬间分解为各双极细胞通路所施加的兴奋性或抑制性驱动。在 OSR 现象中,该分析精准定位出三类双极细胞的协同作用——两类维持周期放电,第三类在闪光缺失时诱发预测性爆发。 更深入的机制归因揭示了“激活(Activation)”与“因果贡献(Contribution)”之间的巨大鸿沟:神经回路中虽然观察到广泛的群体激活,但最终决定输出的因果贡献却极其稀疏。造成这种稀疏性的关键是电压阈值过滤,以及兴奋性通路与抑制性通路之间强烈的“相互抵消(Cancellation)”。在数字识别网络实验中,兴奋与抑制通路的抵消幅度高达 46 倍;当通过正则化将其压缩至 18 倍以下时,网络性能彻底崩溃,证明强烈的推拉对抗是实现精确神经计算不可或缺的内在机制。 Baccus 强调,结合真实连接组约束与自然刺激的生物对齐神经网络已超越单纯的响应预测工具,成为能够生成可验证假设的机制解释平台。然而,当前模型仍面临未能涵盖暗视觉微光刺激、全视网膜数十种亚型一一对齐可能引发过拟合等局限;未来基于严格细胞级一一映射的视网膜模型,将与皮层中不依赖单细胞对齐的功能表征模型形成互补与探讨。

Source quotes

[46:44] ستيفن باكوس: كما بدأت الشبكية كأرضية اختبار لفهم كيفية عمل الحوسبة العصبية، أعتقد أن هذه الأساليب التي تصل إلى الأساسيات، أي مستوى الخلايا والمشابك والمرشحات، هي نقطة انطلاق مهمة لفهم كيفية عمل الشبكات البيولوجية والاصطناعية على حد سواء. [11:41] ستيفن باكوس: في الواقع، كانت الشبكات العصبية التلافيفية مستوحاة في الأصل من النظام البصري. [28:23] ستيفن باكوس: والحقيقة هي أن المشكلة تكمن في أنه لا يوجد شيء اسمه تجربة متكررة حقاً. أليس كذلك؟ لا توجد حالة يكون لديك فيها نفس المحفز بالضبط مع نفس تاريخ حركات العين.

Original transcript

[0:08] شكراً لك يا برايان [0:10] على هذه المقدمة [0:11] اللطيفة. وشكراً لكما [0:12] يا برايان وناريس على [0:14] دعوتي لإلقاء [0:15] المحاضرة الأولى في [0:16] هذه السلسلة المثيرة [0:17] للاهتمام. وأعتقد أنه [0:19] من المناسب حقاً البدء [0:21] بهذه السلسلة من خلال [0:23] دراسات الجهاز البصري [0:25] الأولي. أعتقد أنه من [0:27] الإنصاف القول بأنه [0:29] بالنسبة لأي شبكة [0:30] عصبية بأي مستوى من [0:31] التعقيد، فإننا لا [0:33] نفهم حقاً كيفية عملها [0:34] . سواء كانت شبكة عصبية [0:36] بيولوجية أو شبكة [0:38] عصبية اصطناعية. لقد [0:39] كانت دراسات الجهاز [0:41] البصري الأولي، ولا [0:42] سيما الشبكية، في [0:44] طليعة فهم كيفية تجميع [0:45] الخلايا والمشابك [0:47] العصبية لأداء بعض [0:48] العمليات الحسابية [0:50] المفيدة. لذا، سأتحدث [0:52] عن بعض تلك الدراسات [0:54] وما تعلمناه منها، [0:55] وأيضاً عن المنهجية [0:57] التي أعتقد أنها ذات [0:59] أهمية وفائدة كبيرة، [1:00] ليس فقط لفهم الجهاز [1:02] العصبي، بل ربما لفهم [1:04] كيفية عمل الشبكات [1:06] العصبية بشكل عام. [1:08] سأبدأ في الواقع [1:10] بالقول إنني أفترض، [1:11] وقد سمعت، أن هناك [1:13] مجموعة واسعة من [1:15] الخلفيات العلمية هنا. [1:18] سأحاول مخاطبة هذا [1:19] النطاق الواسع من [1:21] الخبرات. إذا لم أكن [1:22] شاملاً بما يكفي، يرجى [1:24] مقاطعتي وطرح أسئلة [1:26] أساسية. إذن، ماذا [1:28] يعني بشكل عام فهم [1:29] نظام ما؟ يمكننا إجراء [1:34] نقاش طويل حول ذلك، [1:35] ولكن يمكنني سرد بضعة [1:37] أهداف قد نرغب في [1:39] تحقيقها. أحدها هو وصف [1:41] وظيفة النظام، مثل [1:42] اكتشاف مفترس أو [1:44] التكيف مع مشهد بصري، [1:46] وربط تلك الوظيفة [1:47] بالآليات كخلايا [1:48] والمشابك العصبية، [1:50] والقدرة على صياغة [1:52] نظرية ومبادئ نظرية [1:53] حول سبب عمل الوظيفة [1:55] والآليات بالطريقة [1:57] التي تعمل بها. تعد [1:58] النماذج الحاسوبية [2:00] ضرورية لهذه العملية، [2:02] خاصة في أي مستوى من [2:04] التعقيد مثل النظام [2:05] البصري، لأن الأبعاد [2:07] العالية للمدخلات [2:09] والآليات تتطلب حقاً [2:10] التعامل مع نماذج [2:12] حاسوبية إذا كنت ترغب [2:14] في تحقيق ما تعتبره [2:15] تفسيراً. لذا، كانت [2:19] الشبكية، التي تقع في [2:21] الجزء الخلفي من العين [2:23] ، مكاناً مفيداً حقاً [2:25] لمعالجة هذه المشكلات [2:27] وتحقيق مستوى من الفهم [2:29] للعمليات الحسابية [2:31] البسيطة نسبياً. بشكل [2:34] عام، نحن نفهم ما [2:36] تفعله الشبكية. إنها [2:38] تترجم الإشارات [2:39] البصرية إلى معلومات [2:41] في العصب البصري. هنا، [2:43] هذا رسم توضيحي لخلية [2:45] عقدية في الشبكية تطلق [2:47] نبضات بشكل متكرر [2:49] استجابةً لمحفز متكرر. [2:51] ويمكنك رؤية أنها [2:52] قابلة للتكرار، ولكن [2:53] هناك بعض الضجيج أو [2:55] الاضطراب الذي يحد من [2:56] نقل المعلومات. إنها [2:57] أيضاً دارة عصبية [2:58] بسيطة نسبياً، تتكون [3:00] من ثلاث طبقات من [3:01] أجسام الخلايا. ويمكنك [3:02] استخراجه من حيوان [3:03] ووضعه في طبق، وسيتصرف [3:04] تقريبًا بنفس الطريقة [3:06] التي يتصرف بها داخل [3:07] الحيوان. لذا، سيكون [3:09] الهدف هو فهم وتفسير [3:11] ماهية الشفرة العصبية [3:13] ، وكيف ننتقل من هذا [3:14] التسلسل من المعلومات [3:16] البصرية التي تهبط على [3:18] طبقة المستقبلات [3:20] الضوئية إلى تسلسل من [3:22] النبضات في العصب [3:23] البصري. لماذا تختلف [3:25] في الخلايا المختلفة؟ [3:27] جزئيًا، يعود ذلك إلى [3:28] أن خلايا العقد [3:29] المختلفة ترصد مناطق [3:31] مختلفة من المجال [3:32] البصري، لكن لديها [3:34] أيضًا خصائص مختلفة، [3:35] وميزات بصرية مختلفة، [3:37] إذا جاز التعبير، تحفز [3:38] أنماطًا مختلفة من [3:40] النبضات. فيما يتعلق [3:41] بالوظائف، على الرغم [3:43] من أن الشبكية لا تقوم [3:44] بأشياء مثل التعرف على [3:46] الوجوه، إلا أن هناك [3:47] فئة معينة من الوظائف [3:49] التي تؤديها الشبكية. [3:50] يمكنك تصنيفها إلى [3:52] فئات مثل الكشف، [3:54] والتكيف مع هذه [3:55] الإحصائيات، والضغط، [3:57] وتقدير المسارات، [3:59] والتنبؤ، وإلى حد ما [4:01] التصنيف. تصنيف [4:03] المحفزات. إذًا، بعض [4:05] التفاصيل البيولوجية [4:07] الأساسية التي ستحتاج [4:08] إليها. تتكون الشبكية [4:10] من ثلاث طبقات من [4:11] أجسام الخلايا. يتم [4:12] امتصاص الضوء بواسطة [4:14] المستقبلات الضوئية. [4:15] تنتقل الإشارات [4:16] مباشرة إلى الخلايا [4:17] ثنائية القطب عبر مسار [4:19] استثاري، ثم إلى [4:20] الخلايا العقدية، وهو [4:21] مسار استثاري أيضًا، [4:22] وهناك سلسلة من [4:23] الخلايا العصبية [4:24] المثبطة، والخلايا [4:25] الأفقية، وخلايا [4:26] أماكرين التي تقوم [4:28] بعمل اتصالات جانبية. [4:29] هناك خمسة أنواع [4:30] أساسية من الخلايا فقط [4:31] ، مما يجعل الأمر سهل [4:33] التعامل معه، ولكن [4:34] هناك قدرًا لا بأس به [4:35] من التعقيد. ربما يوجد [4:36] الآن ما يقرب من 100 نوع [4:38] فرعي، ربما اثنا عشر [4:39] نوعًا مختلفًا من [4:40] الخلايا ثنائية القطب [4:42] ، و 30 أو أكثر من خلايا [4:43] أماكرين، وحوالي 30 [4:45] خلية عقدية شبكية. من [4:47] التنظيمات المبسطة [4:48] أنه كتقريب أولي، تغطي [4:51] كل خلية من هذه [4:52] الخلايا المجال [4:53] البصري مثل الفسيفساء. [4:55] لذا، خلية عقدية معينة [4:57] ، قد تكون هناك أنواع [4:59] متعددة، ولكن في أي [5:00] موقع واحد، يوجد نوع [5:02] واحد فقط من تلك [5:03] الخلية العقدية. هذا [5:06] التنظيم المتكرر يبسط [5:08] حقًا عملية فهم كيفية [5:10] عمل الدائرة، ويترجم [5:12] بشكل طبيعي إلى نماذج [5:14] حسابية سأتحدث عنها. [5:20] حسنًا. إذًا، كيف نقوم [5:22] بذلك؟ النهج [5:24] الكلاسيكي هو أخذ [5:25] وظيفة عالية المستوى [5:27] مثل اكتشاف اتجاه جسم [5:29] متحرك، واختيار محفز [5:31] معين لاختبار تلك [5:32] الوظيفة، وعادة ما [5:34] يكون محفزًا [5:35] اصطناعيًا مثل شريط [5:37] متحرك أو بقع وامضة. ثم [5:40] ، يحتاج المرء إلى [5:41] إجراء تجربة فعالة. [5:43] الأنسجة الحيوية لا [5:45] تدوم طويلاً، لذا عليك [5:46] تحديد محفزاتك [5:47] وتنظيمها بكفاءة [5:49] وإنجاز تجربتك في غضون [5:50] ساعة أو ساعتين. وبعد [5:52] ذلك، إذا تمكنت من [5:53] تحديد ظاهرة ما، ستكون [5:55] الخطوة التالية هي [5:56] إنشاء نموذج حاسوبي [5:58] يلتقط استجابات [5:59] الخلايا العصبية. [6:00] وعندما تحصل على ذلك [6:02] النموذج الحاسوبي [6:03] المجرد، الذي لا يكون [6:05] حيوياً بالضرورة، [6:06] تحاول حينها معرفة كيف [6:07] ستقوم هذه المجموعة من [6:09] الخلايا والتشابكات [6:10] العصبية بأداء ذلك [6:12] الترشيح الخطي أو [6:13] عمليات تحديد العتبة [6:14] تلك؟ وبمجرد القيام [6:16] بذلك، تولد فرضية [6:17] للدائرة التي يمكنك [6:19] بعد ذلك اختبارها [6:20] تجريبياً بطرق مختلفة. [6:22] ثم تجادل حول مدى [6:23] ملاءمة ذلك للمشاهد [6:25] الطبيعية، لأن الأمر [6:26] برمته حُدد باستخدام [6:27] محفزات اصطناعية مثل [6:29] النقاط الوامضة [6:30] والقضبان المتحركة. [6:31] لذا، ما قمنا به على [6:33] مدار العام الماضي، أو [6:35] بالأحرى السنوات [6:36] العشر الماضية، هو [6:38] اتباع نهج جديد، طريقة [6:39] جديدة للقيام [6:41] بالأشياء، وهي البدء [6:42] بالخوض في العمق [6:44] مباشرة، بتقديم محفز [6:45] طبيعي لشبكية العين في [6:47] طبق أو للقشرة البصرية [6:49] للفأر، وهو ما نسجله [6:51] بنوع مختلف من تقنية [6:53] الأقطاب المتعددة [6:54] التي سأتحدث عنها. [6:56] والخطوة الأولى إذن هي [6:58] إنشاء نموذج حاسوبي [6:59] دقيق يلتقط تلك [7:00] الاستجابات. والآن، [7:02] يعد اختيار النماذج [7:04] أمراً بالغ الأهمية [7:05] هنا وسأتعمق في ذلك [7:07] أكثر. ونقطة البداية [7:09] التي أود قولها هي أنه [7:10] إذا كنت ستصنع نموذجاً [7:12] ، فإن السؤال الأهم هو [7:13] لماذا تصنع هذا [7:14] النموذج؟ لأن هناك [7:16] العديد من أنواع [7:17] النماذج لأهداف عديدة [7:18] ومختلفة. إذن، والهدف [7:20] هنا هو القدرة على ربط [7:22] الحسابات بالآلية كما [7:24] ذكرت. لذا، بعد اختزال [7:26] استجابات الشبكية [7:27] والقشرة في نموذج [7:29] حاسوبي، ننتقل بعد ذلك [7:31] لفحص النموذج بطرق [7:32] عديدة ومختلفة. افحصه [7:34] بمحفزات لم تستخدمها [7:36] فعلياً في التجربة. [7:38] حلل اتصالات الخلايا [7:39] لأنواع الخلايا [7:41] النموذجية داخل [7:42] النموذج، وولد فرضيات [7:43] يمكنك العودة [7:45] لاختبارها تجريبياً، [7:46] ثم طور تفسيراً [7:47] إضافياً حيث تقوم [7:49] بالكثير من العمل [7:50] محاكاةً على الحاسوب. [7:52] وهو أمر سيكون شاقاً [7:53] جداً جداً جداً إذا [7:55] قام به المرء تجريبياً [7:56] . حسناً، لنتحدث عن [7:59] المشاهد الطبيعية. [8:00] لماذا تعتبر المشاهد [8:02] الطبيعية تحدياً؟ لذا [8:03] ، بينما تتقدم بضع [8:04] تشابكات عصبية فقط [8:06] داخل الشبكية، إذا [8:07] توقفت عند العصبون من [8:09] الدرجة الثانية، أي [8:10] الخلية ثنائية القطب، [8:11] ورسمت خريطة [8:12] لحساسيتها البصرية [8:14] الزمانية المكانية، [8:15] وهو ما يمكنك فعله [8:16] بشيء مثل الضوضاء [8:17] البيضاء. أنت تقدم [8:19] ضوضاء بيضاء للشبكية [8:20] وتسجل من الخلايا ثم [8:21] تربط بين المحفز [8:23] والاستجابة. لذا يمكنك [8:24] رؤية أن للخلايا [8:25] ثنائية القطب بنية [8:26] معينة للمجال [8:27] الاستقبالي، وأوزان [8:28] محددة عبر المكان [8:29] والزمان. تبدو هكذا. [8:31] إنها منطقة مركزية قد [8:33] تكون استثارية، ومحيط [8:34] قد يكون تثبيطي، ولكل [8:36] منها مسارات زمنية [8:38] مختلفة. إذن هذا نوع من [8:40] الاستجابة الذي يمكن [8:41] للمرء تقريبه بنموذج [8:43] خطي بسيط. ولو كان [8:45] النظام البصري بأكمله [8:46] كهذا، لكان بسيطاً [8:48] جداً لأن ذلك المرشح [8:49] الخطي سيتنبأ بأي [8:51] وجميع المحفزات [8:52] البصرية التي تقدمها [8:54] للنظام البصري. الأمر [8:56] ليس بهذه البساطة. لذا [8:57] فإن السبب الرئيسي [8:59] الذي يمكنك العثور [9:00] عليه، وهو الأول [9:01] والقوي حقاً، هو ذلك [9:03] الطرف التشابكي [9:04] للخلية ثنائية القطب. [9:06] هناك عتبة قوية تنشأ [9:07] من قنوات الكالسيوم [9:09] ذات الجهد الكهربائي، [9:11] وبدون الخوض في تفاصيل [9:13] النقل التشابكي، إذا [9:15] لم تكن قد تعلمت، [9:16] عندما تستقطب الخلية [9:18] ثنائية القطب، يدخل [9:20] الكالسيوم ولكن فقط [9:21] إذا تجاوز عتبة إزالة [9:23] الاستقطاب. حسناً، هذه [9:25] العتبة تعني أن [9:26] الإشارات ذات القوة [9:27] المعينة فقط هي التي [9:29] سيتم نقلها إلى الخلية [9:30] العقدية. حسناً، هذا [9:32] لا يزال وصفاً كمياً [9:34] بسيطاً نسبياً. قد [9:35] تبدأ، إذا درست الذكاء [9:37] الاصطناعي أو تعلم [9:38] الآلة، في التعرف على [9:39] اللبنات الأساسية [9:41] للنماذج المستخدمة [9:42] على نطاق واسع لأغراض [9:43] عديدة، مثل الترشيح [9:45] المكاني الزمني [9:46] والعتبات التي تشبه [9:47] وحدات التصحيح الخطي [9:48] الحقيقية. حسناً، [9:50] المشكلة هنا هي وجود [9:51] أنواع عديدة ومختلفة [9:52] من هذه الخلايا [9:53] العصبية. هناك حوالي [9:54] اثني عشر نوعاً من [9:55] الخلايا ثنائية القطب [9:56] تقريباً. كل منها له [9:58] مجال استقبالي مكاني [9:59] وزمني مختلف، ونوع [10:00] مختلف من السمات [10:02] البصرية التي تستجيب [10:03] لها. بعضها كبير، [10:04] وبعضها صغير، وبعضها [10:06] بطيء، وبعضها سريع، [10:07] وبعضها ثنائي الطور [10:08] بشكل أكبر. وهكذا [10:10] بمجرد أن تبدأ في [10:11] امتلاك هذه المجموعة [10:13] المختلفة من [10:14] الحساسيات، سيتم [10:15] تنشيط أي خلية تالية [10:17] تتلقى مدخلات من أكثر [10:19] من واحدة من هذه [10:20] الخلايا اعتماداً على [10:22] المحفز. وهكذا يحتوي [10:24] المشهد الطبيعي على [10:25] الكثير من التباين [10:26] المكاني والزماني. قد [10:28] تكون إحدى الصور أكثر [10:29] ملاءمة لخلية ثنائية [10:30] القطب معينة، وقد تكون [10:32] صورة أخرى أكثر ملاءمة [10:33] لخلية ثنائية القطب [10:34] مختلفة. الخلية [10:36] التالية التي تثبط [10:37] مخرجات كلتيهما سيكون [10:39] لها حساسية بصرية [10:41] تتطابق مع خلية ومحفز، [10:43] وخلية أخرى ومحفز آخر. [10:45] إذن بشكل فعال، [10:46] المجالات الاستقبالية [10:47] ليست ثابتة إذا فكرت [10:49] فيها بهذه الطريقة [10:50] الخطية للمجال [10:51] الاستقبالي والجمع [10:52] المكاني. تتغير [10:54] مجالاتها الاستقبالية [10:55] الخطية طوال الوقت مع [10:57] كل محفز. قد تقول الآن [10:58] أنك تعلم، المجال [11:00] الاستقبالي ككل ثابت، [11:01] لكن هذه خاصية غير [11:02] خطية. وهكذا بمجرد أن [11:04] تبدأ في الحصول على [11:06] هذا التنوع في [11:07] الحساسية مع العتبات [11:08] والجمع، فكلما صعدت [11:10] أكثر في النظام البصري [11:12] ، زادت التعقيدات التي [11:14] تواجهها. وهكذا كلما [11:15] احتجنا إلى نماذج أكثر [11:17] تعقيداً للتمثيل بدقة [11:18] ، فإنها تتنبأ [11:19] بالاستجابات. حسناً، [11:22] ما نوع النماذج التي [11:23] يمكن للمرء استخدامها [11:25] ومتى؟ عند تفصيل [11:27] الدائرة الكهربائية [11:29] وتجريدها على مستوى [11:30] الخلية ثنائية القطب، [11:32] يمكن القول إنها تتلقى [11:34] مدخلات من مجموعة من [11:35] المستقبلات الضوئية، [11:37] ويمكنك تجريدها [11:38] بأوزان تشابكية كما هو [11:40] الحال في الشبكات [11:41] العصبية. لقد ذكرت [11:43] العتبة بالفعل. وهكذا [11:46] يمكن تعيين هذا [11:47] التنظيم البسيط لمرشح [11:49] مكاني أو مرشح مكاني [11:51] زماني متبوعاً بعتبة. [11:53] لذا يمكنك تسمية هذا [11:54] بالمجال الاستقبالي [11:55] للمرشح المكاني [11:56] الزماني للميزة [11:57] البصرية المفضلة. كل [11:59] هذه أسماء مختلفة لشيء [12:01] واحد. وإذا جمعت [12:02] بينهما، أي الترشيح [12:03] المكاني المتبوع [12:05] بعتبة، يمكنك الإشارة [12:06] إلى هذا كنموذج خطي [12:07] غير خطي، وهو مستخدم [12:09] على نطاق واسع في علم [12:10] الأعصاب البصري الحسي. [12:12] سأتحدث الآن عن عمل [12:14] بدأه طالبان في [12:15] الدراسات العليا، [12:17] نيرو ولين، تحت إشراف [12:19] سوري جانجولي وأنا. [12:20] عملت لين في مختبري [12:22] ونيرو في مختبر سوري. [12:24] كلاهما أجرى تجارب [12:26] ونماذج محاكاة. وهو [12:28] أمر أعتقد أنه مهم [12:29] جداً لمنحهما البصيرة. [12:32] وهكذا طبقوا، وكان ذلك [12:35] في عام 2016، مجموعة من [12:37] النماذج الحسابية [12:39] التي كانت تكتسب زخماً [12:41] وقبولاً وانتشاراً [12:43] متزايداً. وهذه هي [12:44] الشبكات العصبية [12:46] التلافيفية التي [12:47] سمعتم عنها بالطبع. [12:48] الآن وقد تحدثت عن [12:50] لبنات بناء النظام [12:51] البصري المبكر، سأوضح [12:53] كيف تنتقل وتتطابق [12:54] تماماً مع أجزاء [12:55] الشبكات العصبية [12:57] التلافيفية. لقد تحدثت [12:58] بالفعل عن المرشحات [13:00] المكانية والعتبات. [13:01] يمكنك تعزيز ذلك بمرشح [13:03] مكاني زماني. أي إذا [13:05] كررتها في هذا الهيكل [13:07] الفسيفسائي، تماماً [13:08] مثل فسيفساء خلايا [13:10] الشبكية، فإنها تصبح [13:11] طبقة تلافيفية في شبكة [13:13] عصبية. وإذا كان لديك [13:16] طبقة تلافيفية ذات [13:17] قنوات متعددة، كما [13:18] يُطلق عليها، لكل منها [13:20] خصائص ترشيح خاصة بها، [13:22] فهذا يشبه تماماً [13:23] أنواع الخلايا [13:24] المتعددة في الشبكية. [13:27] ثم إذا أضفت طبقة أخرى [13:28] مع أنواع خلايا أخرى [13:30] ومرشحات أخرى، فهذا [13:31] يشبه تماماً التسلسل [13:33] الهرمي الذي تحدثت عنه [13:35] . لذا، بالانتقال من [13:36] الخلايا ثنائية القطب [13:38] إلى خلايا أماكرين، [13:39] وما إلى ذلك، فإن [13:40] المطابقة وثيقة جداً. [13:42] في الواقع، كانت [13:43] الشبكات العصبية [13:44] التلافيفية مستوحاة [13:45] في الأصل من النظام [13:46] البصري. لذا، ما فعلته [13:48] لينا ونيرو هو تطبيق [13:50] هذه النماذج على [13:51] تسجيلات الشبكية، [13:53] وسأتحدث عن ذلك بعد [13:54] قليل. قبل القيام بذلك [13:56] ، أود التحدث قليلًا [13:58] عن استخدام أنواع [13:59] مختلفة من النماذج، [14:01] والتي سبق أن أشرت [14:02] إليها، لأن النموذج [14:03] يجب أن يُختار بناءً [14:05] على الغرض الذي [14:06] يُستخدم من أجله. لذا، [14:09] في الجانب البسيط، [14:10] يوجد هذا النموذج [14:12] المسمى بالنموذج [14:13] الخطي-غير الخطي (LN)، [14:15] مع مرشح مكاني أو [14:17] زماني-مكاني متبوع [14:18] بعتبة. في الجانب [14:20] الآخر، توجد أشياء مثل [14:21] الشبكات العصبية [14:22] التلافيفية العميقة. [14:24] حتى أنهم يطورونها [14:25] لتصبح أكبر وصولًا إلى [14:27] المحولات. هذه نماذج [14:28] معبرة للغاية، حيث [14:29] يمكنها التقاط أي [14:31] علاقة بين المدخلات [14:32] والمخرجات تقريبًا. [14:34] إنها متعطشة جدًا [14:35] للبيانات. لذا، إذا [14:36] كنت ستقوم بملاءمة أحد [14:37] هذه النماذج الكبيرة، [14:39] فيجب عليك إدخال [14:39] الكثير من البيانات [14:40] فيها. في الوسط توجد [14:42] فئة مختلفة. لذا، مجرد [14:44] خطوة واحدة أعلى من [14:45] نماذج LN سيكون نموذج [14:47] LN-LN، وهو ما يشبه شبكة [14:49] من طبقتين. في الوسط [14:50] توجد نماذج معبرة إلى [14:52] حد ما. يمكنها التقاط [14:54] علاقات المدخلات [14:55] والمخرجات. لكنها [14:56] أيضًا قابلة للتفسير [14:58] آليًا، وهذا ما وجدناه [14:59] في الشبكية. لذا، ما [15:01] نستخدمه هو ما يمكن أن [15:02] تشير إليه كنماذج شبكة [15:04] عصبية تلافيفية دنيا. [15:05] إنه أصغر نموذج يمكنه [15:07] التقاط البيانات. وإذا [15:11] كان هناك أي موضوع أو [15:13] قضية يمكننا بدء نقاش [15:16] أكبر حولها، فسأقول [15:17] إنه سيكون من هذه [15:19] الشريحة. لأن اختيار [15:23] مكانك في هذا التسلسل [15:25] الهرمي ليس ثابتًا [15:27] بشكل جيد، وهو أيضًا [15:29] محل جدل إلى حد ما. [15:31] صحيح. لذا، كما ذكرت، [15:33] يمكنك التعامل مع [15:35] المشكلة باستخدام [15:36] نماذج كبيرة جدًا، [15:38] لكنها متعطشة [15:39] للبيانات. لذا، نحاول [15:41] البقاء عند هذا [15:42] المستوى المتوسط. هذا [15:43] المستوى المتوسط [15:45] يستفيد من الكثير من [15:46] المعرفة التي لدينا [15:47] حول الجهاز العصبي. [15:49] نحن نعرف عن بنية [15:50] الشبكية. نحن نعرف عن [15:52] أشياء مثل [15:52] الديناميكيات [15:53] والمشابك العصبية [15:54] التي يمكنك بناؤها [15:55] والتي قمنا ببنائها [15:56] بالفعل. لذا، لدينا كل [15:58] ما يسمى بالانحياز [15:59] الاستقرائي. هذا الأمر [16:01] صعب نوعًا ما لأن عليك [16:03] إجراء تجارب والتعلم [16:04] عن الجهاز العصبي. إذا [16:06] كنت تريد العمل هنا، [16:07] فلن تحتاج بالضرورة [16:09] إلى معرفة هذه الآليات [16:10] . يمكنك فقط طرح نماذج [16:12] كبيرة والكثير من [16:13] البيانات. لكن ما [16:14] يوفره لك الانحياز [16:16] الاستقرائي هو الحاجة [16:18] إلى بيانات أقل بكثير [16:19] وأيضًا هذا الارتباط [16:21] الآلي. لذا، فإن [16:23] السؤال أو [16:24] الاستراتيجية هنا هي [16:25] تحديد ماهية التفاصيل [16:27] والقيود التي يجب [16:28] إدراجها، لأنك لا تريد [16:30] الإفراط في وضع القيود [16:31] . إذا وضعت الكثير من [16:32] القيود، فلن يتمكن [16:33] نموذجك من العثور على [16:34] الإجابة الصحيحة. ولكن [16:36] ، إذا لم تضع ما يكفي [16:37] منها، فلن يتمكن [16:37] النموذج من العثور على [16:39] الإجابة الصحيحة [16:40] بسهولة، وقد لا تحصل [16:41] على أي رؤية آلية. [16:42] يمكننا العودة إلى هذه [16:43] النقطة لاحقاً إذا [16:44] كانت لديكم أسئلة [16:45] إضافية. حسناً. [16:47] التجارب تبدو بهذا [16:48] الشكل تقريباً في هذه [16:50] الخريطة. لذا، نحن [16:53] نأخذ شبكية عين من [16:55] حيوان، سواء كان [16:57] سمندراً، أو مؤخراً [16:59] انتقلنا إلى الفئران. [17:02] نضعها على طبق وهو [17:03] عبارة عن مصفوفة [17:05] متعددة الأقطاب [17:06] الكهربائية. وهذا [17:08] الطبق به بضعة أنواع [17:10] مختلفة، لكن النوع [17:12] الأساسي الذي نستخدمه [17:13] هو أسلاك سلبية تسجل [17:15] فقط النشاط الكهربائي [17:17] لنبضات خلايا الشبكية [17:19] العقدية. نحافظ على [17:20] بقاء الشبكية حية [17:21] بمحلول ملحي فسيولوجي [17:23] ، وتظل كذلك لبضع [17:24] ساعات. نسلط على [17:26] الشبكية مثيراً [17:27] بصرياً، ويمكننا [17:29] تقديم مثيرات بصرية [17:31] اصطناعية أو طبيعية. [17:35] أحد هذه المثيرات، [17:37] وهذا قديم نوعاً ما، [17:39] لكن أحد الأمثلة قد [17:40] يبدو هكذا. إذن، ها هو [17:42] مثير يحتوي على مجموعة [17:44] من الصور الطبيعية [17:46] المهتزة بإحصائيات [17:47] حركات العين [17:48] التثبيتية، لمحاكاة [17:50] حركات العين السريعة [17:52] كل ثانية تقريباً. أما [17:54] الآن فنحن نستخدم [17:55] أفلاماً طبيعية نقوم [17:57] بتصويرها في الميدان. [17:58] على مقياس الخلايا في [18:00] الشبكية، سيبدو [18:01] المثير شيئاً كهذا. [18:03] إذاً، هذا سيكون إذاً، [18:05] هذه ستكون خلية ثنائية [18:06] القطب، وهي بحجم بكسل [18:08] هنا تقريباً، وخلية [18:09] عقدية ببضعة بكسلات، [18:10] وبعض هذه الخلايا [18:11] الأماكرينية الكبيرة [18:12] يمكنها في الواقع أن [18:14] تمتد عبر كامل الشبكية [18:15] . لذا، الطريقة التي [18:17] نضبط بها هذه النماذج [18:19] هي من خلال تسجيل [18:20] استجابات نبضات [18:21] الخلايا العقدية، [18:23] ربما لبضع عشرات من [18:24] الخلايا العقدية أو [18:25] أكثر، تجاه مشاهد [18:27] طبيعية، ثم نضبط [18:28] النماذج لمحاولة [18:29] التنبؤ باستجابة [18:30] النبضات من المثير [18:32] الذي قدمناه للشبكية. [18:33] لذا، أعني أنه يمكنك [18:35] التفكير في هذا كمصنف، [18:36] لكن ما نحاول تصنيفه [18:38] هو وجود نبضة أو عدم [18:39] وجودها. وبهذه الطريقة [18:41] ، نبني نموذجاً [18:42] حاسوبياً يتنبأ [18:43] باستجابات معدل إطلاق [18:45] نبضات الخلايا [18:46] العقدية. لذا، ما [18:48] وجدناه على الفور هو [18:49] أن هذه النماذج دقيقة. [18:51] وهذا ليس بالأمر [18:52] المفاجئ كثيراً. هذا [18:54] نموذج من ثلاث طبقات، [18:55] يحتوي على أنواع خلايا [18:57] أقل من الشبكية [18:58] الفعلية. إنه نموذج [19:00] صغير نوعاً ما، ومع [19:02] ذلك فهو لا يزال أكثر [19:03] دقة بكثير من نماذج LN. [19:05] هذا هو استجابة معدل [19:07] إطلاق خلية عقدية. تصل [19:09] الدقة تقريباً إلى سقف [19:11] الضجيج الذي يمكننا [19:12] إيجاده عن طريق تكرار [19:14] محفزات متطابقة. فيما [19:16] يتعلق بمدى صغر [19:17] النموذج الذي نستخدمه [19:19] ، يمكننا زيادته عبر [19:21] مجموعة من أنواع [19:22] الخلايا في أول طبقتين [19:24] واختيار مستوى يقترب [19:26] من حد الاستقرار في [19:28] قدرته على التقاط [19:29] الاستجابة. كان ذلك [19:31] حوالي ثمانية أنواع من [19:32] الخلايا في كل من [19:33] الطبقتين الأوليين. [19:34] بالنسبة للفئران، [19:36] الآن هذه كانت تسجيلات [19:37] لسمندل الماء. مع [19:38] الفئران، نستخدم الآن [19:39] قنوات أكثر قليلاً، [19:41] وبعض أنواع الخلايا [19:42] الإضافية. لذا، لم [19:43] تُستخدم هذه النماذج [19:44] للسمندل والفئران [19:45] فحسب، بل يمكنها أيضاً [19:47] التقاط خلايا أماكرين [19:48] في الفئران. قام أشخاص [19:49] آخرون بالتقاط [19:50] استجابات الرئيسيات [19:51] بنفس البنى الهيكلية [19:52] ولكن مع تعديل [19:53] المعلمات. قام مختبر [19:54] تشيتشيلنسكي بالتقاط [19:56] الاستجابة لدى [19:56] الرئيسيات غير [19:57] البشرية، وأيضاً لدى [19:59] البشر. الشبكية [20:00] البشرية. إذن، النموذج [20:02] يتناسب مع البيانات. [20:03] الأمر الأكثر إثارة [20:05] للدهشة بالنسبة لنا [20:06] حدث عندما نظرنا داخل [20:08] النموذج. ما وجدناه [20:10] عند تسجيل الحقول [20:11] الاستقبالية للخلايا [20:13] العصبية البينية في [20:15] النموذج هو أن هذه [20:16] الحقول كانت تبدو [20:17] مألوفة جداً. بنية [20:19] مركزية محيطية، كما [20:21] ذكرت. مسارات زمنية [20:23] مختلفة، وأحجام [20:25] مختلفة. وبدا الأمر [20:26] كما لو أن ما يكشف عنه [20:27] النموذج، على الرغم من [20:29] أننا قمنا بالمطابقة [20:30] فقط من البداية إلى [20:31] النهاية من التحفيز [20:32] البصري إلى النبضات، [20:34] هو أن البنية الداخلية [20:35] للنموذج كانت مشابهة [20:36] جداً لما قد تتوقعه في [20:38] الطريقة. لقد ذهبنا [20:39] إلى أبعد من ذلك [20:40] وأجرينا تجارب حيث [20:41] قمنا بوضع قطب كهربائي [20:43] في النموذج. لقد أخذنا [20:45] ببساطة مستوى نشاط [20:46] خلية عصبية بينية في [20:47] النموذج استجابة [20:48] للمحفز ووضعنا قطباً [20:50] كهربائياً في شبكية [20:51] حقيقية في تحضير مختلف [20:53] . كانت هذه في الواقع [20:54] مجموعة كبيرة من [20:55] البيانات التي كانت [20:56] موجودة لدينا بالفعل [20:58] من تجارب سابقة. ثم [20:59] نظرنا لنرى ما إذا كان [21:00] هناك أي تطابق بين [21:01] الخلايا العصبية [21:02] البينية في الشبكية [21:03] الحقيقية والخلايا [21:05] العصبية البينية في [21:06] النموذج استجابة [21:07] لمحفزات متطابقة. [21:08] ووجدنا أنها كانت [21:09] مترابطة بشكل كبير. [21:11] إليك النموذج وأفضل [21:13] خلية عصبية مناسبة من [21:15] مجموعة بيانات، وتذكر [21:17] أن هذين لم يكن بينهما [21:19] أي علاقة ببعضهما [21:21] البعض. كانت هذه مجرد [21:23] تحضيرات مختلفة، ولم [21:25] يكن لدى النموذج أي [21:27] معرفة مسبقة [21:28] باستجابات العصبونات [21:30] البينية. إليك بعض [21:32] الأمثلة على مطابقة [21:33] البيانات مع النموذج. [21:35] تذكر أنه بالنظر إلى [21:37] هذا التنظيم [21:38] الفسيفسائي للشبكية، [21:39] لا توجد سوى خلية [21:41] واحدة في كل موقع من [21:42] نوع معين. لذا، لا يوجد [21:44] في الواقع سوى ثمانية [21:45] مرشحين محتملين في كل [21:47] من الطبقتين للمطابقة [21:48] مع نموذج العصبون [21:50] البيني الخاص بنا. [21:52] لأقنعكم أكثر فيما [21:53] يتعلق بالقياس الكمي، [21:55] فإن العصبونات [21:56] البينية الحقيقية [21:58] تتسم بالتشويش. [21:59] المطابقة بين عصبون [22:01] بيني وآخر ليست مثالية [22:02] . لذا، يمكننا النظر في [22:04] المطابقة بين جميع [22:05] العصبونات البينية في [22:06] مجموعة بياناتنا [22:07] وكذلك النظر إلى أفضل [22:08] مطابقة، وهناك معامل [22:10] ارتباط يبلغ حوالي 0.6. [22:11] ثم نظرنا إلى المطابقة [22:13] بين العصبونات [22:14] البينية الحقيقية [22:16] ونموذجنا، وكانت أكثر [22:17] قليلاً من 0.5. وهذا [22:19] يقترب جداً من [22:20] الارتباط الحقيقي بين [22:22] العصبونات البينية. [22:25] وهذا بدوره غيّر هذه [22:27] النماذج من مجرد أداة [22:29] للتنبؤ بالاستجابة [22:31] إلى شيء يمكننا اكتساب [22:33] رؤى حقيقية منه. لأنه [22:38] إذا كان نموذجنا [22:40] قادراً على التقاط [22:41] الاستجابات وربما [22:43] التقاط استجابات [22:44] الحسابات المهمة، [22:46] وكان يحتوي على آليات [22:48] داخلية ووحدات داخلية [22:50] تطابق العصبونات [22:51] الحقيقية، فيمكننا [22:53] استخدامه لتوليد [22:54] فرضيات حول كيفية عمل [22:56] الشبكية الحقيقية. لن [23:01] أتحدث كثيراً عن [23:02] الوظيفة. ما الذي [23:04] تفعله الشبكية؟ بشكل [23:05] عام وبخطوط عريضة. [23:08] يمكننا تصنيف وظائف [23:09] النظام البصري المبكر [23:12] بطرق مختلفة. يمكننا [23:14] القول إن أحد أهم [23:16] أدوار الشبكية هو [23:18] التكيف مع إحصائيات [23:19] المشهد، للضغط وإنشاء [23:21] تمثيل أكثر كفاءة. [23:23] إنها تتكيف مع الإضاءة [23:25] ، والتباين، [23:25] والتغيرات، والأنماط [23:27] الزمانية والمكانية، [23:29] لإبراز الجوانب [23:30] الجديدة. تكتشف [23:31] الشبكية ميزات مهمة [23:33] معينة مثل اتجاه [23:35] الحركة، والحركة [23:36] التفاضلية عندما [23:38] يتحرك جسم بشكل مختلف [23:40] عن العين، أو إذا عكس [23:42] الجسم اتجاهه. هناك [23:44] أنواع مختلفة من [23:46] الاستجابات التنبؤية [23:48] التي تقوم بها خلايا [23:50] الشبكية، مثل توقع [23:52] حركة الجسم، وتوقع [23:53] المثيرات الدورية، [23:55] وتصبح أكثر حساسية [23:57] للجسم إذا تحرك ثم [23:59] توقف، حيث تتنبأ [24:00] أساساً بأن الجسم لا [24:02] يزال موجوداً. كل هذه [24:06] الظواهر اكتُشفت على [24:08] مدى عقود من الخبرة [24:10] المضنية باستخدام [24:11] مثيرات اصطناعية [24:12] بطريقة ما. مدى صلتها [24:14] بالمثيرات الطبيعية [24:16] ليس معروفاً تماماً. [24:17] هل تحدث نفس الأشياء [24:18] تحت تأثير المثيرات [24:19] الطبيعية؟ وهذا سؤال [24:21] يصعب الإجابة عليه [24:22] نوعاً ما. حرصاً على [24:27] الوقت، ولتجنب الخوض [24:29] في تفاصيل غير ضرورية، [24:31] سأمر بسرعة على بضع [24:33] ظواهر. لكن الرسالة [24:38] الجوهرية ثابتة [24:39] للجميع، وهي أننا قمنا [24:41] بملاءمة النموذج مع [24:42] المشاهد الطبيعية [24:44] فحسب، أليس كذلك؟ لقد [24:46] اختبرنا عقوداً من [24:48] الأدبيات حول هذه [24:49] الظواهر لنرى ما إذا [24:51] كان النموذج قادراً [24:52] على التعميم [24:53] ومحاكاتها رغم عدم [24:55] تدريبه صراحةً عليها. [24:59] لذا، بحثنا فيما إذا [25:01] كانت عصبونات النموذج [25:03] تتكيف مع التباين. [25:05] مجدداً، كل هذه [25:06] المنحنيات تعني شيئاً [25:08] ما، لكنني سأكتفي [25:10] بالمرور عليها بسرعة. [25:12] والإجابة هي نعم بشكل [25:13] أساسي. لقد تكيفت [25:15] النماذج مع التباين. [25:17] ومن المثير للاهتمام [25:18] أن النماذج التي [25:19] استجابت للمشاهد [25:21] الطبيعية فعلت ذلك. [25:22] أما النماذج التي [25:23] استجابت للضوضاء [25:24] البيضاء، والتي لم [25:26] تحتوِ على تغيرات في [25:27] التباين، فلم تفعل ذلك [25:28] . وهذا يشير إلى...أن [25:33] الحل يقتصر فقط على [25:35] الاستجابات داخل نطاق [25:37] مجموعة التدريب. لذا، [25:39] إذا اختبرت النموذج [25:40] بمحفزات بعيدة جداً عن [25:42] إحصائيات مجموعة [25:43] التدريب، فلن يتمكن [25:44] بالضرورة من التعميم. [25:46] التعميم. لكن المشاهد [25:48] الطبيعية، كما ذكرت [25:49] سابقاً، تنشط أنواعاً [25:50] مختلفة من الخلايا ذات [25:51] السمات البصرية [25:52] المتنوعة. لذا، يبدو [25:53] أنها محفز كافٍ لدفع [25:55] الكثير من هذه الظواهر [25:56] والسماح للنموذج [25:57] بالتقاطها. حسناً. [26:00] الخلايا التي تغير زمن [26:02] استجابتها بناءً على [26:04] قوة المحفزات، [26:05] النموذج يقوم بذلك. [26:08] ظواهر مثل مضاعفة [26:10] التردد، وهي خاصية غير [26:13] خطية، وخلايا تعكس [26:14] قطبيتها، وخلايا تطلق [26:17] نبضات سريعة عند عكس [26:19] اتجاه المحفز، وهو ما [26:21] يعد انتهاكاً [26:23] للتوقعات. إشارة. [26:26] خلايا تتوقع [26:27] الاستجابة للحركة. [26:29] خلايا تتنبأ، بعد [26:30] سلسلة من الومضات، [26:32] بفقدان ومضة معينة. [26:34] وإذا فُقدت ومضة، [26:35] فإنها تطلق إشارات في [26:37] وقت الومضة المتوقعة، [26:38] وهو ما يسمى استجابة [26:39] المحفز المحذوف. لقد [26:40] قامت هذه النماذج بكل [26:42] هذه الأمور، رغم أنها [26:43] لم تُدرّب عليها أبداً [26:44] . هناك ظاهرة أخرى [26:47] سأقضي وقتاً أطول [26:49] قليلاً في شرحها لأننا [26:51] تعمقنا فيها، وهي نوع [26:53] من الخلايا يستجيب [26:55] للحركة التفاضلية، [26:57] كتحرك جسم مقابل خلفية [26:59] ناتجة عن حركة العين. [27:03] لكن هذه الخلايا لا [27:05] تستجيب للحركة الكلية [27:07] الناتجة عن العين فقط. [27:09] إذًا، هذه فئة من [27:11] الخلايا تُدعى خلايا [27:13] حساسة لحركة الأجسام، [27:14] والتي تم تحديدها منذ [27:16] حوالي 20 عامًا، وهي [27:18] خلايا تؤدي نوعًا [27:20] خاصًا من التمييز [27:21] المهم بين الأجسام، [27:23] حيث تكشف عن الأجسام [27:25] التي تختلف عن حركات [27:26] العين في الخلفية. إذا [27:29] أخذت نسبة الحركة [27:30] الكلية إلى الحركة [27:31] التفاضلية، يمكنك [27:32] رؤية أن الكثير من [27:33] الخلايا يتم كبتها، [27:35] لذا ستكون هذه الخلايا [27:36] الحساسة لحركة [27:37] الأجسام هنا في الأسفل [27:39] . في البداية وجدنا أنه [27:41] مع الصور الطبيعية [27:42] المرتجفة، لم يقم [27:44] النموذج بإعادة إنتاج [27:46] حساسية حركة الأجسام. [27:48] شعرنا بخيبة أمل [27:49] قليلاً حيال ذلك، [27:50] لكننا أدركنا أن [27:51] النماذج المدربة على [27:52] محفزات مرتجفة لا [27:54] تحتوي في الواقع على [27:55] حركة تفاضلية فيها. [27:57] لذا عرضنا أفلاماً [27:58] طبيعية، وقام النموذج [27:59] بالفعل بإعادة إنتاج [28:00] هذه الظاهرة. وهذا [28:01] يظهر مجددًا أنه إذا [28:03] كانت فئة المحفز [28:04] موجودة في مجموعة [28:05] التدريب، يمكن [28:07] للنموذج التقاطها، [28:08] وإلا فلا. حسنًا. إذًا [28:11] لدينا نوع من النماذج [28:13] الدقيقة التي تلتقط [28:14] مجموعة واسعة من [28:16] الظواهر، ولديها [28:17] أيضًا آليات عمل [28:19] داخلية تطابق [28:20] البيانات الحقيقية. [28:23] فبماذا يمكننا [28:24] استخدام هذا؟ أحد [28:25] الأشياء التي قمنا بها [28:27] هو القدرة على استخدام [28:29] هذه النماذج لاكتشاف [28:30] ظواهر جديدة. بالإضافة [28:32] إلى تسجيل الخلايا في [28:34] الشبكية، نقوم أيضًا [28:35] بتسجيل الخلايا من [28:36] القشرة البصرية للفأر [28:38] باستخدام نوع من [28:39] مصفوفات الأقطاب [28:40] الكهربائية المتعددة [28:41] تسمى "نيوروبيكسلز"، [28:43] والتي ننزلها إلى [28:44] القشرة البصرية [28:45] الأولية للفأر. نحن [28:46] نتتبع العين لأننا [28:47] مختبر متخصص في [28:48] الشبكية، وقد نحتاج [28:49] إلى معرفة ما هي صورة [28:51] الشبكية. لو لم نقم [28:52] بتتبع العين، لما [28:53] عرفنا ما هي تلك [28:54] الصورة. لذا، تبدو [28:55] التجربة شيئًا كهذا. [28:57] هنا فأر يجري على عجلة [28:58] في بيئة واقع افتراضي [29:00] يشاهد مشهدًا طبيعيًا. [29:02] هذا الفأر لا يحتوي [29:03] على قطب كهربائي في [29:04] رأسه. إنه يعتاد فقط [29:06] على الجهاز هنا. إذًا، [29:08] هذا هو نوع المحفز [29:10] الذي نقدمه من أجل [29:11] إجراء هذه التسجيلات. [29:15] يظهر هنا مثال لتتبع [29:17] حركة العين إلى جانب [29:19] الخلايا التي نقوم [29:20] بتسجيلها. ويمكنك رؤية [29:23] شيء واحد بوضوح وهو أن [29:25] العين تتحرك غالبًا. [29:27] هذا تعقيد لا نواجهه [29:28] مع طبق الشبكية، حيث [29:30] لا يمكننا التحكم بشكل [29:31] كامل في المحفز البصري [29:33] . لذا، في التجارب [29:34] المتكررة، يمكن أن [29:36] تبدو الاستجابات [29:37] متغيرة للغاية كما هو [29:39] موضح هنا. والحقيقة هي [29:40] أن المشكلة تكمن في [29:41] أنه لا يوجد شيء اسمه [29:43] تجربة متكررة حقاً. [29:44] أليس كذلك؟ لا توجد [29:46] حالة يكون لديك فيها [29:48] نفس المحفز بالضبط مع [29:49] نفس تاريخ حركات العين [29:51] . ما وجدناه هو أن [29:52] الشبكات العصبية [29:53] التلافيفية (CNNs) [29:54] الأكبر قليلاً يمكنها [29:56] إعادة إنتاج هذه [29:57] الاستجابات. إذًا، [29:58] يمكنك رؤية الاستجابة [29:59] الحمراء تتماشى مع [30:00] التباين هنا لأن [30:01] النموذج يعرف ما هي [30:03] حركات العين. إنه [30:04] يمتلك الصورة الشبكية. [30:06] وفي بعض الحالات، يمكن [30:07] أن تكون استجابة [30:08] المحاولة الواحدة [30:10] أعلى من ارتباط متوسط [30:11] الاستجابة بين [30:12] المحاولات غير [30:13] المتطابقة. هذه [30:16] النماذج أسوأ بكثير من [30:18] نماذج الشبكية لأن [30:20] هناك أموراً أخرى تحدث [30:21] في الدماغ والقشرة [30:23] البصرية بخلاف [30:24] المدخلات البصرية. [30:28] لكننا نأمل أيضاً أن [30:30] تكون مفيدة وتنبؤية [30:31] بشأن الظواهر التي [30:33] تحدث. حسناً. إذًا، أمم [30:36] . لقد أشرت من قبل إلى [30:39] أن أحد الأشياء التي [30:40] يمكننا القيام بها [30:41] باستخدام هذه النماذج [30:43] هو تجارب فعالة في [30:44] السيليكون. لذا، تم [30:46] إجراء هذا بواسطة [30:47] وادينغتون، وهو فحص [30:50] نموذج القشرة البصرية [30:52] لخاصية حساسية حركة [30:53] الأجسام، والتي لم يتم [30:55] وصفها حقاً بنفس [30:56] الطريقة في القشرة كما [30:58] تم وصفها سابقاً في [31:00] الشبكية. لذا، قدم [31:02] محفزات حركة تفاضلية [31:04] باتجاهات متنوعة، [31:06] مركزاً الجسم فوق كل [31:08] خلية بطريقة يصعب جداً [31:10] القيام بها في تجربة [31:12] تجري عبر مجموعة من [31:14] ظروف التحفيز. وفي [31:15] النهاية، تمكن من [31:17] إظهار أن هناك خلايا [31:18] في النموذج أكثر [31:19] حساسية للحركة [31:20] التفاضلية منها [31:21] للحركة العالمية. إذًا [31:23] ، هذه هي خلايا حساسة [31:24] لحركة الأجسام، في حين [31:26] أن خلايا أخرى ليست [31:27] حساسة للحركة [31:28] التفاضلية، وهي خلايا [31:29] غير حساسة لحركة [31:30] الأجسام (non-OMS). هذا [31:31] مجرد نموذج، أليس كذلك [31:33] ؟ هذا مجرد تنبؤ. كما [31:35] قدم فئة مختلفة من [31:37] المحفزات حيث تكون [31:38] الحركة ربما أكثر صلة [31:40] بيولوجياً، حيث تكون [31:42] نوعاً من الحركة [31:43] الانجرافية الأكبر [31:45] ربما مقابل خلفية [31:46] منجرفة إذا كان [31:47] الحيوان يتحرك. ووجد [31:49] أن هناك فئتين [31:51] مختلفتين من الخلايا [31:52] الحساسة لحركة [31:53] الأجسام في الشبكية [31:55] وفي القشرة. تلك [31:57] الموجودة في الشبكية [31:59] فضلت محفزات الارتعاش [32:00] الدقيقة هذه. لقد حسب [32:02] مؤشراً لمعرفة ما إذا [32:04] كانت الخلية تتمتع [32:06] بحساسية لحركة [32:07] الأجسام استجابة [32:09] لمحفز ارتعاش دقيق [32:10] مقابل هذا المحفز [32:12] الانجرافي الأكبر. وقد [32:14] فضل نموذج الشبكية [32:16] محفزات الارتعاش، [32:17] بينما فضل نموذج [32:19] القشرة المحفز [32:20] الانجرافي الأكبر. لذا [32:23] ، ومن خلال تلك [32:24] المجموعة المستهدفة [32:26] من المحفزات التي [32:27] يمكنها إبراز هذه [32:29] الظواهر في نموذج ما، [32:30] عاد وأجرى تجارب. [32:32] وكانت استجابات [32:33] الشبكية واستجابات [32:34] القشرة تتماشى إلى حد [32:35] كبير مع التفضيل الذي [32:37] تم العثور عليه في [32:38] نموذج الشبكية. إذن، [32:39] هذا يخبرنا بشيء لم [32:41] نكن نعرفه، شيء [32:42] اكتشفناه بالفعل في [32:43] النموذج ولم نعد [32:45] لاختباره. وبدون الخوض [32:46] في هذه التفاصيل أكثر، [32:48] لأنني أريد تغيير [32:49] الموضوع في الوقت [32:51] المتبقي. نحن نعتقد أن [32:52] الخلايا الشبكية [32:54] الحساسة لحركة [32:55] الأجسام تكتشف وجود [32:56] جسم ما بحساسية عالية، [32:58] بينما ينقل القشر [32:59] المخي معلومات مختلفة [33:01] حول هوية هذا الجسم. [33:02] ويمكننا في الواقع، من [33:04] خلال مطابقة نموذج [33:05] بمخرجات نموذج آخر، [33:07] تقديم مؤشر على أنه [33:08] يبدو أنهما يعملان [33:09] بالتوازي بدلاً من أن [33:11] يكون أحدهما مشتقاً من [33:13] الآخر. حسناً. إذن، [33:18] النماذج، كما ذكرت، [33:19] تحتوي على وحدات نمطية [33:21] عصبية ترتبط بخلايا [33:23] عصبية حقيقية. كيف [33:25] يمكننا التعلم من ذلك؟ [33:26] كيف يمكننا الاستفادة [33:28] من ذلك؟ وبشكل أوسع، [33:29] كيف يمكننا طرح سؤال [33:31] حول كيفية بناء [33:32] الحوسبة؟ إذن، كيف [33:33] تعمل الخلية العصبية [33:35] في الدارة، وما الذي [33:36] تفعله لتوليد [33:37] المخرجات؟ السؤال [33:39] العام الذي يمكننا [33:40] توضيحه هنا هو: ماذا [33:42] تفعل هذه الخلية [33:43] العصبية؟ وظيفة أو [33:47] تأثير الخلية العصبية [33:49] هو تكوين، أي تكوين [33:51] رياضي حرفياً، من [33:52] مرحلتين. هذا يشمل كل [33:55] ما وصل إلى المدخلات [33:57] هنا، ويُشار إليه [33:58] بالمجال الاستقبالي، [33:59] وكل ما يخرج من الخلية [34:01] إلى المخرجات، ويُشار [34:03] إليه بالمجال [34:04] الإسقاطي. في النظام [34:06] الخطي، ستتكون هذه [34:08] الأشياء ببساطة وبشكل [34:10] مباشر. وبالتالي، [34:11] يمكنك ببساطة أخذ حاصل [34:13] ضرب المجال [34:14] الاستقبالي الخطي [34:15] والمجال الإسقاطي [34:17] الخطي، كضرب خارجي إذا [34:18] كنت تتعامل مع مصفوفات [34:20] . وهذا سيكون في الأساس [34:24] سهلاً للتنبؤ به. ومع [34:26] ذلك، هذا النظام ليس [34:28] خطياً كما ذكرت. [34:30] بالطبع، سيتعين عليك [34:31] قياس ذلك، وتجريبياً [34:32] سيكون هذا أمراً صعباً [34:34] للغاية. لقد أجرينا [34:35] بعض التجارب من هذا [34:36] القبيل، ولكن في [34:38] النموذج يمكنك [34:39] قراءتها كمشتق [34:40] للاستجابة بالنسبة [34:41] للمدخلات ومشتق [34:42] للمخرجات بالنسبة [34:44] لاستجابة الخلية. [34:50] طوّرنا نهجاً لتوسيع [34:51] ما يسمى بطرق الإسناد، [34:53] والتي توضح كيف يتم [34:55] توجيه المخرجات [34:56] بواسطة البكسلات في [34:58] الصورة، وذلك للإجابة [34:59] على السؤال بالنسبة [35:01] للخلايا العصبية [35:02] البينية. في الحالة [35:05] غير الخطية، ولتوضيح [35:07] المشكلة، إذا أردت طرح [35:08] سؤال حول ما هي [35:10] الخلايا العصبية التي [35:11] أدت إلى هذه الاستجابة [35:13] في هذا المشهد غير [35:15] الخطي؟ حسناً، الأمر [35:17] يعتمد بطريقة ما على [35:18] كيفية وصولك إلى هناك. [35:20] حسناً، إذا كان هذا هو [35:21] اتجاه حساسية العصبون [35:23] البيني الأول، وكان [35:24] هذا هو اتجاه حساسية [35:25] العصبون البيني [35:27] الثاني، فكأنك تسافر [35:28] شمالاً وتسافر شرقاً. [35:29] كنا نتجه شرقاً ونحو [35:31] الشمال. يعتمد الأمر [35:33] على كيفية صعودك للتلة [35:35] . حسناً، إذا سرت في [35:37] هذا الاتجاه، فإن [35:38] العصبون البيني الأول [35:40] هو الذي سيقدم كل [35:42] الحساسية. وإذا سرت في [35:43] هذا الاتجاه، فسيكون [35:45] العصبون البيني [35:46] الثاني. لذا، فإن [35:47] النهج الذي طرحه [35:48] سونداراراجان في [35:50] ورقته البحثية عام 2017 [35:52] كان وسيلة لوصف هذا [35:53] التأثير، هذا المزيج [35:55] من التأثيرات، بحيث [35:57] يكون مجموعها كاملاً، [35:59] مما يعني أن تأثير [36:00] العصبون البيني الأول [36:02] زائد تأثير العصبون [36:04] البيني الثاني زائد [36:05] تأثير جميع العصبونات [36:07] البينية الأخرى يساوي [36:09] المخرج تماماً، ويمكن [36:11] تحقيق ذلك بالتكامل [36:12] على طول مسار مستقيم [36:14] من شيء مثل المحفز [36:16] الصفري وصولاً إلى [36:17] المدخل، ثم جمع كل [36:19] تأثيرات العصبونات [36:20] البينية على طول ذلك [36:22] المسار. يُطلق عليه [36:24] اسم التدرجات [36:25] المتكاملة. قلت سابقاً [36:27] إن التأثير الخطي [36:28] الكلي سيكون حاصل ضرب [36:30] المجال الاستقبالي في [36:31] المجال الإسقاطي. لذا، [36:33] باستخدام طريقة [36:34] التدرجات المتكاملة [36:36] هذه، يكون التأثير غير [36:37] الخطي الكلي هو جمع [36:39] حاصل ضرب التأثيرات [36:40] الصغيرة على المجالات [36:42] الاستقبالية في [36:43] التأثيرات الصغيرة [36:44] على المجالات [36:45] الإسقاطية على طول هذا [36:46] المسار المستقيم من [36:48] المحفز الصفري إلى [36:49] المحفز الفعلي. ثم [36:50] إجراء التكامل على ذلك [36:52] المسار. وهذا سيعطيك [36:55] مساهمة كل عصبون في [36:56] الاستجابة الكلية. مرة [36:59] أخرى، هذا مجرد تطبيق [37:00] لقاعدة السلسلة [37:01] متعددة المتغيرات. وهو [37:03] يشير إلى أن تأثير كل [37:05] هذه العصبونات [37:06] البينية، إذا جمعت [37:07] مساهماتها، سيساوي [37:09] المخرج الكلي. هذه هي [37:11] الرياضيات إذاً. أما [37:12] تطبيق هذه الرياضيات [37:14] فهو الدخول إلى [37:15] النموذج، ولأي محفز [37:16] معين، التساؤل عن [37:18] العصبونات التي أدت [37:19] إليه. حسناً، هذا ما [37:24] تبدو عليه نتيجة [37:25] الحساب. إذا كانت هذه [37:27] استجابة خلية عقدية [37:28] شبكية، وكانت هذه هي [37:30] الخلايا ثنائية القطب [37:31] المختلفة التي تغذيها [37:33] ، فيمكننا في هذه [37:34] اللحظة حساب مباشرة [37:35] داخل النموذج أن هذه [37:36] الخلايا المختلفة [37:38] كانت استثارية، وهذه [37:39] كانت تثبيطية، وقد [37:40] أضافت إلى هذه [37:41] الاستجابة الكلية. أما [37:43] هذه الموجودة هنا فلم [37:44] تفعل الكثير. إذن، من [37:46] الجيد أننا نستطيع [37:47] الاطلاع على الشبكة. [37:48] ما الذي يمكننا [37:49] اكتسابه من حيث الرؤى؟ [37:51] حسناً. إحدى الظواهر [37:52] التي ذكرتها باختصار [37:54] والتي أعاد النموذج [37:55] إنتاجها تسمى استجابة [37:57] المحفز المحذوف. وهذه [37:59] ظاهرة لم نكن نحن ولا [38:01] الآخرون نملك فكرة [38:02] حقيقية عن كيفية عملها [38:04] . تم اختبار نماذج [38:06] مختلفة، ولكن يبدو [38:07] أنها جميعاً تفشل بطرق [38:09] مختلفة. الظاهرة هي [38:10] وميض، وميض، وميض، [38:12] وميض، وميض، تخطي [38:13] الوميض، ثم تطلق [38:15] الخلايا نبضات في وقت [38:16] الوميض المتوقع. وهناك [38:18] استجابة عصبية عند [38:19] توقيت وميض الضوء [38:21] المتوقع. وهذا التحول [38:22] يتغير بتغير التردد. [38:24] لذا، فأنت تغير توقيت [38:26] سلسلة الوميض وتتحول [38:27] الاستجابة العصبية [38:29] وفقاً لذلك. إذاً، هذه [38:32] ظاهرة تنبؤية مفاجئة [38:34] تقوم بها الشبكية. [38:37] حسناً، يمكننا النظر [38:39] إلى النموذج ونرى أنه [38:40] عندما يحدث هذا، يتم [38:42] تحفيز بضعة أنواع [38:43] مختلفة من الخلايا. [38:45] اثنان منها موجودان [38:46] بالفعل لدفع هذه [38:47] الاستجابة المتكررة. [38:49] ثم واحد منها، وهو نوع [38:51] مختلف من الخلايا في [38:52] هذه الحالة، يحفز [38:54] الانفجار العصبي. [38:55] حسناً، يمكننا أن نرى [38:57] أن الأمر يبدو في [38:58] الواقع كمزيج من ثلاثة [38:59] مسارات. ويمكننا أن [39:01] نرى أنه كلما غيرت [39:03] التردد، هناك نسبة [39:04] مختلفة من مساهمات [39:06] خليتين مختلفتين هي [39:08] التي تسبب تحول [39:09] الاستجابة في الوقت. [39:11] نعم، يمكننا فقط قراءة [39:13] كيفية حدوث ذلك من [39:14] الشبكة. لا أعرف إذا [39:16] كنت قد قمت بإنشاء [39:17] نموذج مصغر. حسناً، [39:19] لنتخلص من كل شيء آخر [39:20] باستثناء هذه [39:21] المسارات العصبية [39:22] الثلاثة، أنواع [39:22] الخلايا ثنائية القطب [39:24] الثلاثة هذه. هل يعيد [39:25] ذلك إنتاج الظواهر [39:26] والتردد المتغير؟ نعم [39:27] ، إنه يفعل ذلك. إذاً، [39:29] هذا هو توليد الفرضيات [39:31] التلقائي حقاً. لم نكن [39:32] نعرف كيف يمكن لهذه [39:33] الظاهرة أن تعمل. هذه [39:34] الفرضية، يجب على شخص [39:36] ما العودة واختبارها. [39:37] لكن هذه طريقة، نظراً [39:38] للطبيعة القابلة [39:40] للتفسير ميكانيكياً [39:41] لهذه النماذج، يمكنك [39:42] الانتقال مباشرة من [39:44] ملاءمة مشهد فعلي، [39:45] واختبار الظواهر التي [39:46] تحدث حاسوبياً، ثم [39:47] توليد فرضية يمكنك [39:49] العودة واختبارها. [39:51] حسناً. لذا، في [39:53] الدقائق القليلة [39:55] المتبقية، سأتحدث عن [39:57] تطورات حديثة جداً [39:58] لنهج القابلية [40:00] للتفسير الميكانيكي [40:02] لطرح أسئلة أكثر [40:03] تعقيداً. قد تعتقد: " [40:05] حسناً، إذا كنت تعرف [40:06] ما تفعله كل خلية [40:07] عصبية، فهذا يعطي [40:08] إجابة". حسناً، إنه لا [40:10] يعطي إجابة كاملة في [40:11] الواقع. وللتوضيح، [40:13] إليكم هذا المحفز حيث [40:15] يتحرك شريط للأمام [40:17] ويتحرك للخلف. هذا [40:18] عبارة عن تنعيم مساحة [40:20] أحادية البعد عبر [40:21] الزمن. ها هو الشريط [40:22] يتحرك للأمام ويتحرك [40:24] للخلف. هذه ظاهرة في [40:25] النموذج، لكن يمكننا [40:27] رؤيتها في الشبكية [40:28] الحقيقية أيضاً. لذا، [40:29] يمكنك رؤية الاستثارة [40:31] والتثبيط وأنهما [40:32] ينعكسان بنمط معين. [40:33] إذن، هذا هو النشاط في [40:35] النموذج. أليس كذلك؟ [40:37] في تعلم الآلة، يُطلق [40:38] على هذا اسم التفعيلات [40:40] . والآن، إذا قمت بحساب [40:41] المساهمات، تذكر أن [40:43] هذه هي التأثيرات [40:44] السببية الفعلية [40:46] للخلايا العصبية. [40:47] يمكنك أن ترى أنها [40:48] أكثر تفرقًا بكثير. [40:50] وهذا يتعلق بخلية [40:52] عقدية في موقع معين [40:53] هنا، لنقل، هذا الموقع [40:55] المكاني. وهذا ليس [40:57] مفاجئًا للغاية لأنه، [40:58] كما تعلم، إذا قدمت [40:59] محفزًا كبيرًا جدًا، [41:00] فسيتم تنشيط العديد [41:01] والعديد من الخلايا، [41:03] لكن الخلايا القريبة [41:04] فقط هي التي ستؤثر [41:05] فعليًا على هذه الخلية [41:06] العقدية المحددة. لذا، [41:07] ليس من المفاجئ حقًا [41:09] أن المساهمة أكثر [41:11] تفرقًا بكثير من [41:12] التفعيل، لكنك تعلم، [41:14] هناك الكثير من [41:15] التباين هنا وهناك فرق [41:17] كبير بين المساهمات [41:18] والتفعيلات. لذا، قمنا [41:20] ببعض التحليل لشبكات [41:22] تصنيف الرؤية [41:23] الحاسوبية بما في ذلك [41:25] شبكة ريزنت (ResNet). [41:26] وهكذا، يمكنك رؤية [41:27] الشيء نفسه أيضًا. إذا [41:29] نظرت إلى التفعيلات في [41:30] الشبكة ونظرت إلى [41:31] المساهمات، ستجد أن [41:32] المساهمات أكثر [41:33] تفرقًا بكثير. إذن، [41:35] هذه خلايا عصبية يتم [41:36] تنشيطها، لكنها في [41:37] الواقع لا تفعل شيئًا. [41:38] وهذا يختلف باختلاف كل [41:40] محفز. إذن، لماذا يحدث [41:42] هذا؟ أليس كذلك؟ الآن، [41:44] قد تفكر في تفسيرين أو [41:46] اثنين. أليس كذلك؟ [41:47] لنفترض في شبكة ما، أن [41:49] هذه هي مساهمة هذه [41:50] الخلية العصبية التي [41:51] تحدث عبر كل المسارات [41:52] من خلال مجال [41:53] استقبالها ومجال [41:54] إسقاطها إلى المخرجات. [41:55] ها هي خلية عصبية أخرى [41:57] يتم تنشيطها. لماذا لا [41:59] تفعل أي شيء؟ إذن، أحد [42:00] الاحتمالات هو، حسنًا [42:02] ، أنها لم تصل إلى [42:03] العتبة للخلايا [42:04] النهائية، لذا لم يكن [42:05] هناك أي نشاط آخر. [42:07] احتمال آخر هو وجود [42:08] استثارة قوية صادرة [42:10] عنها، مع تثبيط قوي [42:11] عبر مسار مختلف ألغى [42:13] كلاهما، مما تسبب في [42:15] عدم قيام هذه الخلية [42:17] بأي شيء. وهذه في [42:18] الواقع هي طبيعة عملية [42:20] الحساسية لحركة [42:21] الأجسام التي ذكرتها. [42:23] أنت تعلم، المسار [42:24] الاستثاري يحدث في كل [42:26] مكان عبر الشبكية إذا [42:28] تحرك الجسم في كل مكان. [42:30] ظاهرة كشف حركة [42:31] الأجسام محددة حقًا من [42:34] خلال قمع كل شيء آخر. [42:36] كل شيء آخر يتزامن مع [42:38] حركة العين يتم قمعه. [42:40] إنه في الواقع التثبيط [42:41] الذي يبطل الاستثارة [42:43] هو ما يحدد الحساب. لو، [42:46] الذي يشرف عليّ، وأنا، [42:49] توصلنا بعد ذلك إلى [42:50] طريقة للنظر بشكل أعمق [42:52] من تحليل المساهمة هذا [42:54] ، وهو النظر إلى [42:56] المسارات الفردية. [42:58] المسار الفردي يوصف [43:00] بأنه خلية عصبية تتصل [43:02] بأخرى تليها أخرى [43:03] وهكذا. وبالنسبة لجميع [43:05] المسارات التي تحتوي [43:07] على اتصالات، يمكن [43:09] تعريف مسارات منفصلة. [43:11] والأمر المهم هنا هو [43:12] خاصية الاكتمال التي [43:14] ذكرتها من قبل. إذا [43:15] أخذت تأثير جميع [43:17] المسارات في الاعتبار [43:18] ، فسيشكل ذلك مجموع [43:20] نشاط العصبون. مرة [43:21] أخرى، هذا مجرد تطبيق [43:23] لقاعدة السلسلة [43:24] المتعددة. نحن نستخدم [43:26] التدرجات المتكاملة [43:27] بنفس الطريقة. ولكن [43:28] الآن يمكننا النظر في [43:29] تأثير المسارات [43:30] الفردية. سأشير [43:31] باختصار إلى طريقتين [43:33] بدأنا باستخدامهما، [43:34] رغم أن هذا العمل لا [43:36] يزال قيد التنفيذ، [43:37] ونعتقد أنها أداة [43:38] مفيدة للغاية وعلينا [43:40] معرفة كيفية [43:41] استخدامها بفعالية [43:42] أكبر. في شبكة بسيطة [43:44] للغاية للتعرف على [43:45] الأشياء، وهي الأبسط [43:46] تقريباً للتعرف على [43:48] الأرقام، يمكننا فحص [43:49] الشبكة والنظر في جميع [43:51] المسارات الفعالة في [43:52] توجيه المخرجات [43:53] والتساؤل عن مقدار [43:54] الإلغاء بين التنبيه [43:56] والتثبيط. كم يبلغ [43:57] مقدار الإلغاء بين [43:58] التنبيه والتثبيط؟ [44:01] لقد قمنا بهذا الأمر [44:03] بطريقتين. إذا قمنا [44:06] فقط بتدريب الشبكة، [44:07] وهي شبكة بسيطة، يبدو [44:09] أن هناك حوالي 46 ضعفاً [44:10] من المسارات التي تعمل [44:12] فعلياً وتؤدي وظيفة ما [44:14] . إذن، هناك عامل تضخيم [44:15] بمقدار 46 ضعفاً بين [44:17] التنبيه والتثبيط. تلك [44:18] هي المشكلة. يمكننا أن [44:20] نتساءل، هل هذا ضروري [44:22] حقاً؟ يمكننا تنظيم [44:23] أوزان الشبكة لمحاولة [44:26] تقليلها إلى الصفر [44:27] بطرق مختلفة، مثل [44:29] تنظيم L2 أو L1. يمكنك [44:31] تقليل عامل الإلغاء [44:33] والبدء في تقليص [44:34] المسارات. لكننا لم [44:36] نتمكن من تقليله إلا [44:37] إلى حوالي 18 ضعفاً. [44:39] وبعد ذلك بدأت الشبكة [44:41] في الفشل. يبدو أنه، [44:42] على الأقل مع طريقة [44:44] التدريب هذه، يلزم [44:45] وجود إلغاء بمقدار 18 [44:47] ضعفاً بين التنبيه [44:48] والتثبيط لجعل هذه [44:49] الشبكة تعمل. نحن لا [44:52] نعرف حتى الآن كيف [44:53] تعمل شبكات التعرف على [44:55] الأرقام والصور [44:56] البسيطة هذه. لكن [45:00] لدينا الآن وسيلة [45:01] وأداة يمكنها فعلياً [45:03] فحص تفاعلات المسارات. [45:05] وهذه معلومة جديدة لا [45:06] يمكنك الحصول عليها [45:07] إلا من خلال النظر إلى [45:09] المسارات بأكملها، [45:10] وليس من خلال تأثير [45:11] العصبونات أو نقاط [45:12] الاشتباك العصبي [45:13] الفردية. في الشبكية، [45:14] قمنا بتطبيق هذه [45:15] الأداة من خلال النظر [45:17] إلى الحقول [45:17] الاستقبالية المتغيرة [45:19] التي تحدثت عنها [45:20] سابقاً. إذا أخذت تدرج [45:22] الاستجابة بالنسبة [45:24] للمدخلات، بدلاً من [45:25] مجال الاستقبال، [45:27] يمكنك اعتباره مجال [45:29] استقبال لحظي أو [45:30] تدرجاً لحظياً، وهو [45:32] يتغير مع كل مثير. [45:33] وهناك الكثير من [45:35] التغيير. تتحول [45:36] الخلايا من حالة [45:37] التشغيل إلى الإيقاف، [45:38] وتصبح ثنائية الطور [45:39] بشكل أكبر أو أقل. [45:40] والآن باستخدام طريقة [45:42] مساهمة المسار هذه، [45:43] يمكننا فحص الشبكة [45:44] ورؤية المسارات التي [45:46] تسبب تغير مجالات [45:47] الاستقبال هذه. هنا [45:48] حالة T1 و T2، حيث يغير [45:50] مجال الاستقبال [45:52] اللحظي، المدفوع ببعض [45:54] ميزات المثير، شكله، [45:56] مما يغير حساسية [45:57] العصبون. يمكننا النظر [46:00] إلى المسارات [46:01] المختلفة من أنواع [46:03] خلايا مختلفة في طبقة [46:05] واحدة إلى أخرى لدى [46:07] الفأر، ونرى أنه [46:08] بالنسبة لمثير واحد، [46:10] بل لكلا المثيرين، [46:12] يكون هذا المسار، لنقل [46:14] نوع الخلية 12، هو [46:15] السائد، ولكن هناك [46:17] تغيير. لذا، بالنسبة [46:19] لمثير معين، تكون بعض [46:21] المسارات أكثر فعالية. [46:23] وبالنسبة لمثير آخر، [46:24] تكون مسارات أخرى أكثر [46:26] فعالية. ومجموع هذه [46:27] المسارات سيؤدي بدقة [46:28] إلى تكوين مجال [46:30] الاستقبال اللحظي. لذا [46:31] ، يمكننا حقاً تحليل [46:32] ما الذي يسبب هذا [46:33] التغيير بينما تكون [46:34] مجالات الاستقبال [46:35] ديناميكية ومتغيرة. [46:37] لقد قمنا أيضاً بأشياء [46:38] مثل النظر في أنماط [46:39] مختلفة من التنشيط، [46:41] ودوائر مختلفة تنشط في [46:42] أوقات مختلفة. حسناً، [46:44] سأتوقف هنا وسأختصر [46:46] بالقول إننا وجدنا أن [46:48] نماذج الشبكات [46:49] العصبية للمعالجة [46:50] البصرية لا يمكن أن [46:52] تكون دقيقة وقابلة [46:54] للتعميم فحسب، بل يمكن [46:56] أيضاً تفسيرها آلياً. [46:58] يمكننا تعلم أشياء [46:59] جديدة. يمكنك اكتشاف [47:01] ظاهرة جديدة لهذه [47:02] النماذج. يمكننا [47:05] استخدام أساليب [47:07] التفسير الآلي [47:08] لاكتساب رؤى، وتوليد [47:10] فرضيات حول كيفية عمل [47:12] النماذج، وبالتالي [47:13] كيفية عمل النظام [47:15] الحقيقي. وهذه فرضيات [47:19] تحتاج لمزيد من [47:20] الاختبار. وكما بدأت [47:25] الشبكية كأرضية [47:26] اختبار لفهم كيفية عمل [47:29] الحوسبة العصبية، [47:30] أعتقد أن هذه الأساليب [47:32] التي تصل إلى [47:34] الأساسيات، أي مستوى [47:36] الخلايا والمشابك [47:37] والمرشحات، هي نقطة [47:39] انطلاق مهمة لفهم [47:41] كيفية عمل الشبكات [47:42] البيولوجية [47:44] والاصطناعية على حد [47:45] سواء. لقد أشرت إلى [47:51] المتعاونين والطلاب [47:53] الذين قاموا بكل العمل [47:55] ، وسأتوقف عند هذا [47:57] الحد. [48:06] >> حسناً، هذا إذا كان... [48:08] من فضلك. [48:09] >> نعم، كان لدي سؤال حول [48:11] ، أعتقد، الحركة [48:12] التفاضلية والحركة [48:14] العالمية، حيث كنت [48:16] مرتبكاً بشأن كيفية حل [48:17] ذلك باستخدام النموذج [48:19] الخطي غير الخطي (LN) [48:21] الأولي. هل تم حل ذلك [48:23] بإضافة طبقة إضافية أم [48:24] من خلال التدريب [48:26] باستخدام نوع مختلف من [48:28] بيانات الفيديو التي [48:29] كنت تذكرها؟ [48:31] >> حسناً، عندما تقول "تم [48:33] حلها"، هل تقصد عندما [48:34] انتقلت من عدم [48:36] الملاءمة إلى [48:37] الملاءمة، أم حسناً. [48:39] في الواقع، تم حل [48:40] الأمر بواسطة محفز [48:42] مختلف. حسناً، عندما [48:44] قمنا بالتدريب [48:45] باستخدام محفز لا [48:46] يحتوي على أي حركة [48:47] للجسم، لم يجد النموذج [48:49] الحل. عندما قمنا [48:50] بتضمين تلك الخصائص، [48:52] وجد النموذج الحل. [48:54] الآن، كنا نعرف بالفعل [48:55] كيف، كان لدينا بالفعل [48:57] نموذج جيد جداً لكيفية [48:59] عمله، وهو في الواقع [49:01] طبقتان من الإثارة [49:02] لتوليد حساسية غير [49:04] خطية للغاية وأيضاً [49:05] مسار موازي إضافي [49:07] للتثبيط، أليس كذلك؟ [49:09] لذا، لماذا لم يجد [49:10] النموذج هذا، لم نبحث [49:12] لنرى ما هو الفرق، حيث [49:13] سيكون ذلك مقارنة [49:15] مثيرة للاهتمام. ما هو [49:17] الفرق بين النموذج [49:18] الذي فشل والنموذج [49:19] الذي نجح؟ [49:22] >> لم يكن هناك جزء ذكرته [49:23] للخلايا العصبية [49:25] البينية يشير إلى أنها [49:26] تقترب من ارتباط 0.5، [49:28] وهو في الواقع قريب [49:29] مما هو عليه الحال، [49:31] مثل اقتراب النموذج [49:32] مما هو عليه. أتساءل [49:34] لماذا هذا هو الحال في [49:35] الواقع؟ مثل حوالي 0.5 [49:37] هكذا. [49:38] >> أوه 0. نعم، هل العلاقة [49:40] الحقيقية بين الخلايا [49:42] العصبية البينية هي [49:44] حوالي 0.6 ربما؟ وأود أن [49:46] أقول الضجيج والتباين [49:47] البيولوجي، أليس كذلك [49:49] ؟ السبب في أنها ليست [49:51] نسخاً متطابقة، خاصة [49:52] عبر الحيوانات، وهو ما [49:55] تمت المقارنة على [49:56] أساسه. وهكذا، كما [49:58] تعلم، هناك أيضاً [49:59] أشياء مثل درجات [50:00] الحرية الدورانية [50:01] التي لم تكن متطابقة [50:02] تماماً، وهذه هي [50:04] الاختلافات ضمن [50:05] مجموعتنا. لكن، نعم، [50:06] أعزو ذلك في الغالب [50:08] إلى التباين [50:09] البيولوجي. لست [50:11] متأكداً ما هو ذلك [50:12] السؤال. [50:14] >> إذاً، إذا فهمت بشكل [50:16] صحيح، فأنت بحاجة إلى [50:18] ظاهرة جديدة لتكون [50:19] موجودة في المشهد [50:21] الطبيعي الذي تستخدمه [50:23] كبيانات تدريب [50:24] لاكتشاف هذه الظاهرة [50:26] الجديدة. فكيف تتعامل [50:28] مع اختيار المشهد [50:29] الطبيعي، وكم عدد [50:31] الظواهر الموجودة في [50:32] العينة؟ [50:33] >> صحيح. إذاً، السؤال هو [50:35] جوهرياً ما هو المحفز [50:37] الكافي لاكتشاف ظاهرة [50:39] ما، وكما تعلم، ما هو [50:40] المشهد الطبيعي؟ هذه [50:42] أسئلة مفتوحة، وكما [50:44] تعلم، بدأنا بنوع من [50:46] المحفز الغني جداً [50:47] الذي يحفز الخلايا، [50:49] وهذا ما نفعله في [50:51] القشرة الدماغية [50:52] أيضاً. أمم، كما تعلم، [50:54] أود القول إنه سؤال [50:56] يمكنك الإجابة عليه، [50:58] لنقل، من خلال تدريب [50:59] نموذج لاستعادة نموذج [51:01] آخر. حسناً، إذن ما هو [51:03] المحفز الكافي؟ تعلم، [51:05] قد نرغب في الحصول على [51:07] محفز قصير وفعال لنكون [51:08] قادرين على القيام [51:10] بذلك. تعلم، نحن في [51:12] الواقع لا نعرف ما هي [51:13] الإجابة. أود القول [51:17] إنه شيء سيقوم بإشراك [51:18] الخلايا في المعايير. [51:21] وإذا لم تتجاوز الخلية [51:22] العتبة أبداً بسبب [51:23] المحفز، فلن تمتلك [51:24] المعلومات بأن تلك [51:25] العتبة يجب أن تكون [51:27] هناك أو أن ذلك الوزن [51:28] يجب أن يكون هناك. لذا، [51:29] هذا نوع من التفسير [51:31] عالي المستوى الذي لم [51:33] نقم ببنائه حقاً. [51:36] >> لدي سؤال آخر حول [51:38] المحفز، وهو عندما [51:40] تقوم بهذه التجارب [51:41] لإدخال محفز على [51:43] الشبكية، ماذا عن شدة [51:45] الضوء وربما الطيف؟ [51:47] إذا قمت بتغيير تلك، [51:49] هل تتغير كل هذه [51:50] الاستجابات أم أنها [51:52] خطية فقط مع الشدة، [51:53] إلخ، إلخ؟ [51:54] >> صحيح. إذن، سؤال حول [51:56] شدة أطياف المحفزات. [51:58] وهذا في الواقع تنويع [52:00] آخر لسؤال ما هو [52:01] المحفز الطبيعي. صحيح. [52:03] لذا، نحن لا ننزل إلى [52:04] مستوى العصي، على سبيل [52:06] المثال، المستوى [52:07] الخافت جداً. لذا، من [52:08] المفترض أننا لن نكتشف [52:09] أي شيء حول ذلك [52:10] باستخدام هذه الأنواع [52:12] من المحفزات. وهذا [52:13] يتعلق حقاً باتخاذ [52:14] خيارات حول الظاهرة [52:16] التي نريد اكتشافها. [52:17] في الغالب، نحن لا [52:19] نستخدم محفزات لونية. [52:21] أظن أن هذا ليس صحيحاً [52:22] تماماً. في السمندل، [52:24] لم نستخدم محفزات [52:26] لونية. فقط لأننا كنا [52:27] أقل اهتماماً بتلك [52:29] الخصائص المختلفة. أما [52:31] الآن، مع الفئران، نحن [52:33] نفعل ذلك. لدي باحث ما [52:35] بعد الدكتوراه الذي [52:40] يستخدم محفزات تسمح [52:44] بالتمييز بين [52:45] المدخلات من المخاريط [52:47] القياسية والخلايا [52:49] العقدية الحساسة [52:50] للميلانوبسين، إذا [52:51] كنت تعرف ما هي. لذا، [52:53] نحن الآن أكثر حذراً [52:55] قليلاً بشأن المحفزات [52:56] اللونية. لكننا لم نصل [52:58] حقاً إلى نظام العصي [52:59] هذا. في الأساس، سيجعل [53:01] هذا التجارب أطول، ولا [53:02] حرج في ذلك، ولكن كلما [53:03] زادت كفاءة المحفزات [53:04] لدينا، زادت قدرتنا [53:06] على استكشاف هذا [53:07] النطاق الأوسع من [53:08] الظروف. [53:08] >> شكراً لك. أنا مهتم [53:12] جداً باكتشاف أنواع [53:14] الخلايا الفرعية. أمم، [53:16] إذا حاولت نمذجة، لنقل [53:18] ، 30 أو 100 نموذج. [53:21] بالنسبة لمزارع [53:22] الخلايا الكلية، هل [53:23] تتوقع أن تطابق واحدًا [53:25] لواحد أنواع الخلايا [53:26] الثلاثين أو المئة [53:28] التي ناقشتها في [53:29] الدراسة التي ركزت فقط [53:31] على...هل يمكنك التحدث [53:32] أكثر عما إذا كان هناك [53:34] تخصص أقل، كأن يطابق [53:35] أحد الأنواع الثمانية [53:37] أنواعًا خلايا [53:38] متشابهة جدًا؟ [53:42] >> لإعادة صياغة السؤال، [53:44] إذا كان هناك الكثير [53:45] من الخلايا في أنسجة [53:47] الشبكية بحساسيات [53:49] مختلفة في فضاء [53:50] التحفيز. عندما نقوم [53:52] بملاءمة هذا العدد [53:53] الكبير، هل نجد حقًا [53:55] أننا نستعيدها بشكل [53:56] متطابق؟ قد تكون هناك [53:58] إمكانية لاستعادة [53:59] مساحة فرعية تغطيها [54:01] الخلايا الحقيقية، [54:02] وقد تكون هناك [54:03] ارتباطات، لكن الأمر [54:05] ليس مثاليًا. أعتقد أن [54:07] هذه هي الأسئلة التي [54:08] لدينا، هل هذه إعادة [54:09] صياغة عادلة لسؤالك؟ [54:11] نعم، خاصةً أنه في [54:13] الحالة الأولية حيث [54:14] لدينا أنواع خلايا أقل [54:16] مما في الشبكية [54:18] الحقيقية، فقد تكون [54:20] هناك بعض التنازلات. [54:21] وإذا وضعت عددًا [54:23] كبيرًا جدًا، فقد يكون [54:24] الأمر محددًا بشكل [54:26] مفرط، أليس كذلك؟ [54:27] وحينها ستغطي المساحة [54:29] الفرعية بطريقة [54:30] تكرارية نوعًا ما. تلك [54:32] هي الأمور التي أود [54:33] القول إننا نعمل على [54:35] تحقيقها. شيء آخر [54:37] أعتقد أنه من الممكن [54:39] إضافته، وهو موضوع [54:41] استخدام المعلومات [54:43] المسبقة والتحيز، هو [54:45] وجود "كونيكتوم" [54:46] للشبكية. لقد نظر [54:49] الباحثون في [54:50] الاتصالات الحقيقية، [54:51] وبعض الأشياء التي [54:53] قمنا بها هي محاولة [54:54] تقييد النماذج لتناسب [54:56] ذلك الـ "كونيكتوم" [54:57] وتناسب خصائص [54:58] الاستجابة. وباستخدام [55:00] دالة خسارة متعددة [55:02] الأبعاد، يمكننا [55:04] القيام بذلك. الأمر [55:06] ليس مثاليًا، لكن [55:08] أعتقد أن هذه أشياء قد [55:10] تشجع على الحصول على [55:12] وصف أكثر دقة، وليس [55:14] مجرد مساحة فرعية. [55:16] ولسنا بحاجة بالضرورة [55:17] إلى التدريب من [55:18] البداية إلى النهاية [55:20] ونأمل أن يقدم لنا [55:21] النموذج الإجابة [55:22] الصحيحة بشكل سحري. [55:23] يمكننا بناء هذه [55:24] المعلومات. [55:27] >> بالنسبة لنموذج تتبع [55:28] العين، أشعر بالفضول [55:30] لمعرفة ما إذا كانت [55:31] مقاطع الفيديو [55:32] المختلفة المستخدمة [55:33] قد تؤدي إلى الإفراط [55:35] في التخصيص؛ يبدو من [55:36] الصعب جدًا تتبع العين [55:38] قبل وقوع الحركة، أليس [55:39] كذلك؟ [55:41] >> بالنسبة لتتبع العين، [55:43] نحن نستخدم جهاز تتبع [55:45] بصري يعمل بالأشعة تحت [55:47] الحمراء ويستخدم [55:48] مصابيح LED تحت الحمراء. [55:50] وهكذا يمكننا الوصول [55:52] إلى دقة أقل من درجة [55:53] واحدة، وهو أمر جيد [55:54] جدًا بالنسبة لفأر. [55:56] تعلم، الأمر لن يكون [55:58] مثالياً. وبالتأكيد [55:59] تتحسن النماذج، إذا [56:01] أخذنا محفزاً غير مصحح [56:03] ومحفزاً مصححاً، فإن [56:04] النماذج تصبح أفضل [56:06] بشكل ملحوظ لأن صورة [56:08] الشبكية أكثر دقة. فرط [56:10] التخصيص، أظن أننا [56:11] نتدرب دائماً على [56:12] بيانات سليمة. لذا لست [56:14] متأكداً تماماً مما قد [56:16] يبدو عليه ذلك. سأقول [56:19] إن وجود خطأ في تتبع [56:20] العين هو الأرجح، وهو [56:22] أننا لم نقم بمحاذاة [56:23] المحفز بشكل مثالي. [56:24] هذا صحيح على الأرجح. [56:26] لكن كما تعلم مرة أخرى [56:27] ، إنه أفضل مما كان [56:28] عليه من قبل، ومن [56:29] المحتمل أنه ليس [56:30] مثالياً. [56:32] >> لدينا سؤال آخر هنا ثم [56:34] سأطرح سؤالاً أخيراً. [56:37] >> أنا فقط فضولي، عندما [56:38] انتقلت من الاختبار [56:40] على حيوانات السمندل [56:41] إلى الاختبار على [56:43] الفئران، هل احتجت إلى [56:45] وضع افتراضات جديدة؟ [56:46] هل النوع مهم أم هو... [56:50] >> نعم، لذا فإن نقل [56:51] تجارب المحفزات [56:53] والنماذج من السمندل [56:54] إلى الفئران. لم نحتج [56:58] حقاً للقيام بأي شيء [57:00] بشكل مختلف. كما ذكرت، [57:02] في الواقع نموذج [57:04] الرئيسيات أخذ نموذج [57:06] السمندل الخاص بنا [57:07] وأعاد ضبطه فقط. تتمتع [57:09] شبكيات الفقاريات [57:10] بدرجة عالية من [57:12] التشابه. إنها ليست [57:13] متطابقة تماماً، [57:14] لكنها تحتوي على [57:15] الكثير من أنواع [57:16] الخلايا الأساسية [57:17] نفسها. لذا لم نحتج [57:19] حقاً إلى تغيير البنية [57:21] كثيراً. لقد أضفنا [57:24] القليل من أنواع [57:26] الخلايا، غالباً [57:27] لجعلها أكثر بيولوجية [57:29] بدلاً من جعلها أكثر [57:31] دقة، وأيضاً لمساعدة [57:33] القشرة المخية. لذا، [57:35] وضع القليل من، كما [57:36] تعلم، أحد الأشياء [57:37] التي نقوم بها هو [57:38] ملاءمة نماذج الشبكية [57:40] ، ثم نقوم بملاءمة [57:41] النماذج القشرية [57:42] المدربة على مخرجات [57:43] الشبكية. وهكذا، إنها [57:45] تلك القضية الأخرى [57:46] المتعلقة بمدى [57:47] التقييد الذي نفرضه. [57:48] لذا، حاولنا وضع [57:49] القليل من التفاصيل [57:50] الإضافية في نموذج [57:51] الشبكية لمساعدة [57:52] النموذج القشري في [57:53] الملاءمة. لذا، من حيث [57:54] اختلاف الأنواع في [57:56] الشبكية، أود أن أقول [57:57] ليس كثيراً، لكننا [57:59] قمنا بالنمذجة لأغراض [58:00] أخرى. [58:01] >> لذا، يا ستيفن، أحد [58:03] الأسباب التي دفعتنا [58:05] لتنظيم ندوة هو أنها [58:06] تسمى في الواقع الذكاء [58:08] الاصطناعي والبيانات [58:10] للعلم. وأعلم أن إي جي [58:13] وأعتقد أنت أيضاً، قد [58:15] نشرتم بيانات يمكن [58:17] للناس استخدامها [58:18] بالفعل وملاءمة [58:20] نماذجهم وتجربة أشياء [58:22] ربما لمشاريع دراسية، [58:24] إذا كنت مهتماً. ربما [58:26] يمكنك قول كلمة عن ذلك [58:28] حتى يتمكنوا من معرفة [58:30] كيف يمكنهم إعادة [58:31] تشغيل نماذجك أو [58:33] الحصول على بعض [58:34] البيانات العصبية [58:36] الفعلية للتجربة بها. [58:38] كيف يمكنهم فعل ذلك؟ [58:39] >> نعم، بالنسبة للأوراق [58:41] البحثية المنشورة، تم [58:43] نشر مجموعات البيانات. [58:46] آه، المحفزات الفعلية [58:48] والنماذج المدربة، [58:50] توجد روابط في الأوراق [58:52] البحثية التي يمكن [58:53] للمرء استكشافها. وكما [58:55] تعلمون، هناك أسئلة [58:57] متعددة. لذا، بعض [58:59] الأسئلة التي طُرحت، [59:00] كيف تقدم محفزاً [59:02] كافياً لتقييم خصائص [59:04] نموذج ما؟ إذا كان [59:05] المرء يفكر في مشاريع [59:06] الدورة، فمن الأفضل [59:07] اختيار شيء يمكن [59:08] التعامل معه إلى حد ما. [59:10] وربما يكون ذلك أمراً [59:12] قابلاً للتنفيذ يمكن [59:13] للمرء القيام به. أه، [59:15] كما تعلمون، هناك [59:16] أنواع مختلفة من مناهج [59:18] القابلية للتفسير [59:19] الآلي التي ذكرتها. أه [59:21] ، نعم، أعتقد أن هناك [59:23] مجموعة من الأسئلة [59:24] التي يمكن للمرء أن... [59:26] >> شكراً. وفقط للطلاب، [59:28] بعد أسبوعين من الآن، [59:30] سيكون دان يامينز هنا [59:32] للحديث عن النماذج [59:34] القشرية. وفي الواقع، [59:35] هم يستخدمون نهجاً [59:37] مختلفاً تماماً. فهم [59:38] لا يعتمدون على وجود [59:40] خلية فعلية تطابق خلية [59:43] عصبية تطابق عقدة [59:45] معينة. سيستخدمون [59:47] نهجاً مختلفاً، وربما [59:48] سيعودون وسنجري [59:50] حواراً حول ذلك. لذا [59:51] دعونا نشكر ستيف على [59:53] عرضه.